
الشلال الغذائي: كيف تغيّر المفترسات توازن النظام البيئي؟
كيف تنتقل آثار المفترسات عبر الشبكات الغذائية لتؤثر في النباتات والكائنات الأخرى؟

الشلال الغذائي أثر غير مباشر يبدأ من المفترسات، ثم يعبر مستوىً غذائيًا وسيطًا واحدًا على الأقل، فيغيّر كائنات لم يأكلها المفترس ولم يلامسها. إذا كثرت الأسماك التي تقتات على العوالق الحيوانية، نقصت تلك العوالق، فخف رعيها للعوالق النباتية، وقد يخضرّ الماء من دون أن تكون السمكة قد تغذت على الطحالب المجهرية. هذا الانتقال هو جوهر المفهوم: ليست المسألة من يأكل من فحسب، بل كيف يغيّر وجود المفترس، أو غيابه، الضغط الواقع على المستويات الأدنى.
يُستعمل أحيانًا الاسمان «الشلال التغذوي» و«الشلالات التغذوية» للمعنى نفسه، ويقابله في الأدبيات الإنكليزية مصطلح trophic cascade. بعد هذا التحديد تكفي «الشلال الغذائي». والمفهوم ينتمي إلى علم البيئة المجتمعية، أي دراسة تفاعل الأنواع داخل المجتمع الحي، وإلى علم البيئة الغذائية الذي يتتبع مسارات الغذاء والطاقة. أهميته العملية أنه يفسر بعض تغيرات الغطاء النباتي وصفاء المياه وبنية الموائل، من غير أن يجعل المفترس تفسيرًا لكل تغير يزامنه.
أ. رنا عتيق — خبيرة علوم الأحياء
أ. تيماء محمد صبيح — خبيرة علوم البيئة وتغير المناخ
- الشلال الغذائي أثر غير مباشر ينطلق من المفترس ويعبر مستوى وسيطاً واحداً على الأقل ليغيّر كائنات لم يلامسها.
- يحدث عبر مسارين: تغيّر أعداد الفرائس بالقتل، أو تغيّر سلوكها بفعل الخوف، وأحياناً يعمل المساران معاً.
- السلسلة الغذائية تصف من يأكل من؛ الشلال الغذائي يصف كيف ينتقل الأثر بينهما.
- ثعالب البحر تكبح قنافذ البحر فتزدهر غابات عشب البحر، لكن قوة هذا الأثر تختلف بين الساحل الكندي والكاليفورني.
- عودة الذئاب إلى يلوستون مرتبطة بتراجع رعي الأيائل، لكن أحدث الدراسات ترجّح أن كثافة الأيائل لا الخوف منها هي المفسّر الأقوى.
- في بحيرات المياه العذبة، تغيّر الأسماك المفترسة صفاء الماء عبر سلسلة من أربع حلقات.
- التزامن بين عودة مفترس وتعافي نبات ليس برهاناً. قوة الشلال محلية، وتتغير باختلاف الموقع والزمن وبنية الشبكة الغذائية.
- لا يضمن إعادة مفترس إلى موطنه استعادة النظام البيئي كاملاً إذا تغيّرت الحلقة الوسيطة أو فقدت قاعدة الشبكة قدرتها على الاستجابة.
اقرأ أيضاً: البيئة الفردية: دراسة التفاعل بين الكائن الحي وبيئته المباشرة
الشلال الغذائي باختصار
الشلال الغذائي سلسلة من التأثيرات غير المباشرة تسري عبر مستويات الشبكة الغذائية. أوضح صورة له أن مفترسًا يغيّر الحيوانات العاشبة، فتغيّر النباتات. وقد يحصل ذلك لأن المفترس يقتل الفرائس فتنقص أعدادها، أو لأن الفرائس تخاف فتبدّل أوقات نشاطها وأماكن رعيها وإن بقيت أعدادها قريبة مما كانت عليه. الظاهرة موثقة في البر والبحر والمياه العذبة، لكن شدتها ليست قانونًا واحدًا يُنقل من بحيرة إلى غابة أو من ساحل إلى ساحل. وجود المفترسات العليا لا يصنع النتيجة البيئية نفسها في كل نظام، وتزامن عودة مفترس مع تعافي نبات لا يكفي وحده لإثبات أن المفترس هو سبب التعافي.
أبرز الخلاصات
- الشلال الغذائي تأثير غير مباشر ينتقل عبر مستويات الشبكة الغذائية، ولا يُختزل في العلاقة المباشرة بين المفترس وفريسته.
- مساران ممكنان: قد تتغير أعداد الفرائس، أو يتغير سلوكها ومواضع تغذيتها، وأحيانًا يعمل المساران معًا.
- مثال بحري مشهور: ثعالب البحر تأكل قنافذ البحر التي ترعى الطحالب الكبيرة، ومنها عشب البحر، فيخف ضغط الرعي حين تنجح الثعالب في كبح القنافذ.
- قوة الشلال ليست ثابتة، إذ تتبدل مع بنية الشبكة الغذائية والظروف البيئية ووجود أنواع أخرى تغير مسار الأثر أو تخففه.
- التزامن ليس برهانًا. لا يكفي أن تعود المفترسات وتتعافى النباتات في الفترة نفسها حتى يُنسب التعافي إلى المفترس وحده.
ما الشلال الغذائي، وكيف يختلف عن السلسلة الغذائية؟
التعريف العلمي للشلال الغذائي
في مراجعة نُشرت عام 2016 في مجلة Trends in Ecology & Evolution، اقترح ويليام ريبل وزملاؤه تعريفًا أريد له أن يكون واسع الاستعمال ومنضبط الحدود: الشلالات الغذائية تفاعلات غير مباشرة بين الأنواع، تنشأ من المفترسات وتنتشر نزولًا عبر الشبكات الغذائية. والعبارة «نزولًا» تعني الاتجاه من مستوى غذائي أعلى إلى مستوى أدنى، لا حركة في المكان. وقد بنوا هذا الضبط على تصور روبرت باين للتفاعلات المتداخلة، لا على صورة خطٍّ من الكائنات يأكل بعضها بعضًا.
للتعريف قيد يغيب عن كثير من الشروح العامة. الآثار التي تنطلق بعد الشلال ثم تسري جانبًا إلى أنواع في المستوى نفسه، أو صعودًا نحو مستويات أعلى، سماها أصحاب المراجعة آثارًا تابعة، ورأوا ألا تُحسب جزءًا من الشلال الغذائي نفسه. فإذا غيّر المفترس العواشب ثم النباتات، فهذه سلسلة الشلال. أما إذا تغيّر بعد ذلك منافس للنبات، أو كائن يتغذى على المفترس، فذلك أثر لاحق يحتاج إلى دليل مستقل. منذ ثمانينيات القرن العشرين كان المصطلح محورًا رئيسًا أو موضوعًا كبيرًا في أكثر من ألفي ورقة علمية حتى تاريخ تلك المراجعة، غير أن تعريفاته لم تكن متطابقة، وهذا التباين يعطّل المقارنة ويضعف استعمال المفهوم في الإدارة.
حدّ المفهوم: ليس كل أثر غير مباشر شلالًا غذائيًا. الشلال، بحسب الضبط الذي اقترحه ريبل وزملاؤه عام 2016، ينطلق من المفترس ويتجه إلى أسفل الشبكة. أما ما يتفرع جانبًا أو يرجع إلى أعلى فيُعامل أثرًا تابعًا، إلا إذا بُيّن مساره بدليل خاص.
ويشمل هذا الضبط مسارين لبدء الأثر: التفاعل الاستهلاكي، حين يقتل المفترس الفريسة ويأكلها، والتأثير غير الاستهلاكي، حين يكفي إحساس الفريسة بخطر الافتراس ليغير سلوكها. فالشلال الغذائي ليس وصفًا لمشهد افتراس، بل وصفًا لامتداد أثر المفترس تحت مستواه.
لماذا يسمى هذا التأثير «شلالًا»؟
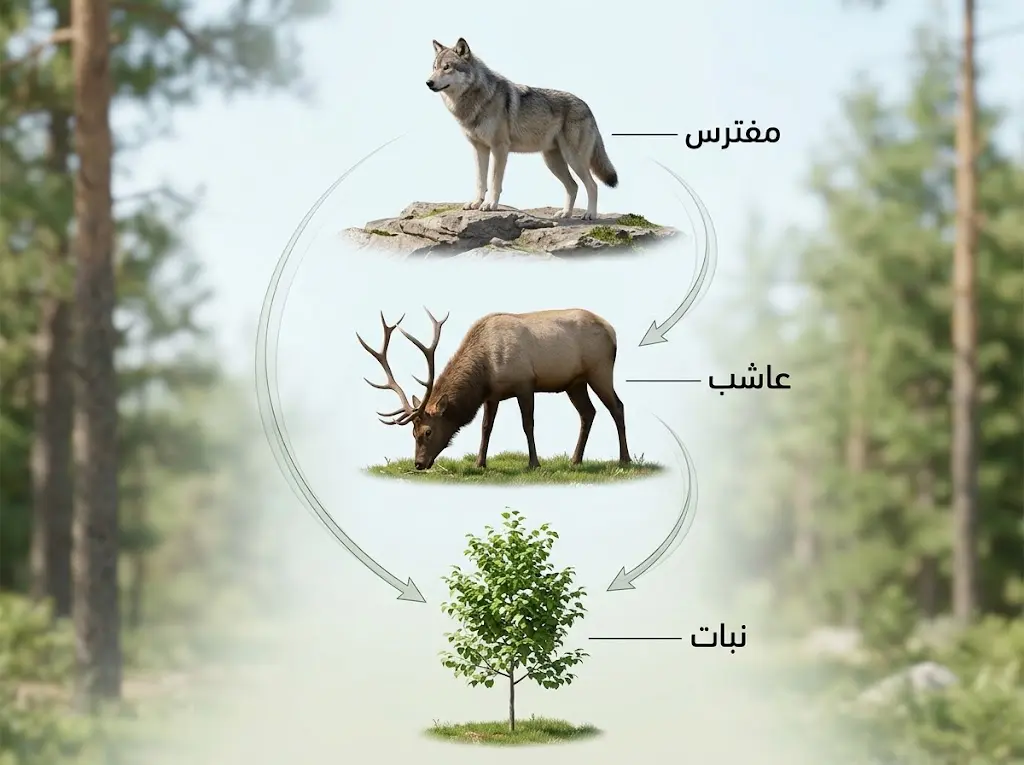
اسم «الشلال» صورة لاتجاه الحركة لا لحجمها. يتغير مستوى واحد، فتسري النتيجة إلى المستوى الذي يليه، ثم إلى ما دونه، كما يغيّر انقطاع الماء في أعلى المجرى ما يصل إلى أسفله. في نموذج من ثلاثة مستويات يوجد مفترس، وحيوان عاشب، ومورد نباتي. إذا زاد المفترس فنقصت العواشب، خف الرعي، فتزيد النباتات أو يتغير تركيبها. المفترس هنا لم يتغذَّ على النبات، ومع ذلك وصل أثره إليه عبر العاشب.
هذا الرسم أداة فهم لا خريطة للطبيعة. الشبكات الحقيقية فيها أكثر من مفترس، وأكثر من فريسة، وفيها كائنات قارتة تأكل من أكثر من مستوى، وفرائس تبدّل غذاءها إذا قلّ موردها المعتاد. لذلك قد يضعف الأثر في الطريق، أو يغيّر اتجاهه، أو يتوقف قبل قاعدة الشبكة. تسمية الظاهرة شلالًا لا تعني أن كل حلقة تُحدِث انقلابًا بالحجم نفسه.
الفرق بين الشلال الغذائي والسلسلة الغذائية والشبكة الغذائية
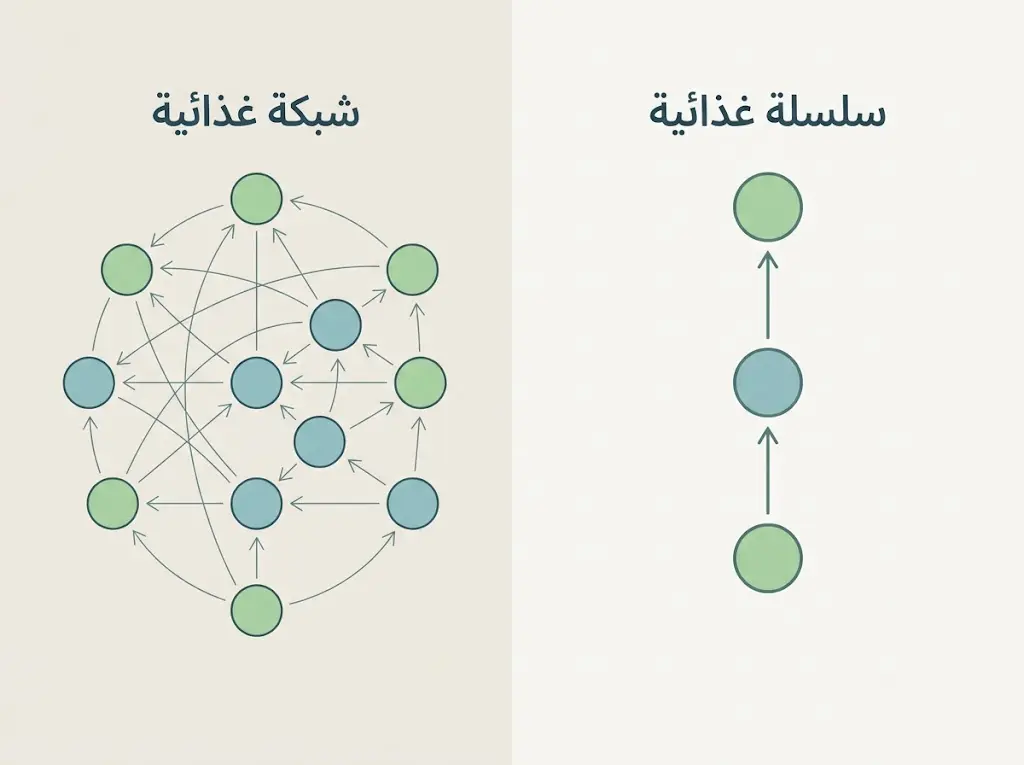
الفرق وظيفي، لا لغوي. السلسلة الغذائية (food chain) تصف مسارًا لانتقال الغذاء والطاقة: نبات، ثم عاشب، ثم مفترس. وهي تبسيط متعمد يُظهر من يأكل من، ولا تخبر بحد ذاتها ماذا يحدث لوفرة النباتات إذا تغيّر المفترس. الشبكة الغذائية (food web) أوسع؛ فهي مجموعة المسارات المترابطة داخل المجتمع، بما فيها الروابط الضعيفة والمسارات البديلة. أما الشلال الغذائي فيصف نمطًا من التأثيرات غير المباشرة التي تعبر هذه المستويات. يمكن أن تُرسم سلسلة من ثلاث حلقات ثم يُدرس الشلال الجاري عبرها، ويمكن أن تبتلع الشبكة الواسعة هذا الأثر فلا يظهر عند النباتات إلا ضعيفًا.
اقرأ أيضاً: هرم الطاقة: كيف تنتقل الطاقة من المنتجات إلى المستهلكات وأين تختفي؟
المستوى الغذائي (trophic level) موضع الكائن في هذا الترتيب بحسب مصدر غذائه. المنتجات الأولية، كالنباتات والعوالق النباتية والطحالب الكبيرة، تبني كتلتها الحيوية من الطاقة والمغذيات. فوقها مستهلكون أولى هم غالبًا العواشب، ثم مستهلكون أعلى. القوارت والكائنات التي تأكل من أكثر من مستوى تجعل الحدود بين المستويات أقل حدة مما يوحي به الرسم المدرسي، وهذا أحد أسباب اختلاف قوة الشلال بين الأنظمة.
هل يشترط الشلال الغذائي تغير أعداد الكائنات؟
لا. نقص الفرائس بسبب قتلها مسار معروف، ويُسمى الأثر غير المباشر الذي تتوسطه الكثافة (density-mediated indirect effect): تتغير كثافة جماعة الفريسة، فيتغير ضغطها على غذائها. لكن الفريسة قد تبقى حاضرة وتغيّر صفتها السلوكية: متى تأكل، وأين، وكم تمكث في المكان المكشوف. فيصل إلى النبات أثر مختلف وإن لم تهبط أعداد العواشب هبوطًا كبيرًا. هذا هو الأثر غير المباشر الذي يتوسطه السلوك أو الصفة (trait-mediated indirect effect). السؤال التالي ليس: أي المسارين هو الشلال «الحقيقي»؟ بل: أيهما يعمل في هذا النظام، وبأي وزن، وهل يعملان معًا؟
| وجه المقارنة | الأثر المتوسط بالكثافة (العددي) | الأثر المتوسط بالسلوك (الترويع) |
|---|---|---|
| التعريف | تغيّر كثافة جماعة الفريسة نتيجة قتلها فعلياً | تغيّر سلوك الفريسة خوفاً من الافتراس دون قتلها بالضرورة |
| الاسم العلمي | density-mediated indirect effect | trait-mediated indirect effect |
| الآلية | استهلاك الفريسة فعلياً عبر الافتراس المباشر | تعديل وقت الرعي ومكانه إدراكاً لخطر الافتراس |
| متوسط الأثر في ديموغرافيا الفريسة (برايسر وزملاؤه، 2005) | نحو 51% من الأثر الكلي للمفترس | نحو 63% من الأثر الكلي للمفترس |
| الأثر في موارد الفريسة (الحلقة التالية) | يضعف، نحو 33% من الأثر الكلي | يبقى قوياً، نحو 85% من الأثر الكلي |
| مثال موثّق في المقال | هبوط كثافة الأيائل في يلوستون (دراسة 2025) | تجنّب الفرائس لمواضع الخطر في الأنظمة المائية القصيرة |
| السياق الذي يغلب فيه | مفترس واسع الحركة وفريسة واسعة التجوال | أنظمة مائية قصيرة السلسلة وفرائس ذات ملاذ مكاني واضح |
كيف يحدث الشلال الغذائي في الطبيعة؟
التأثير عبر تغير أعداد الفرائس
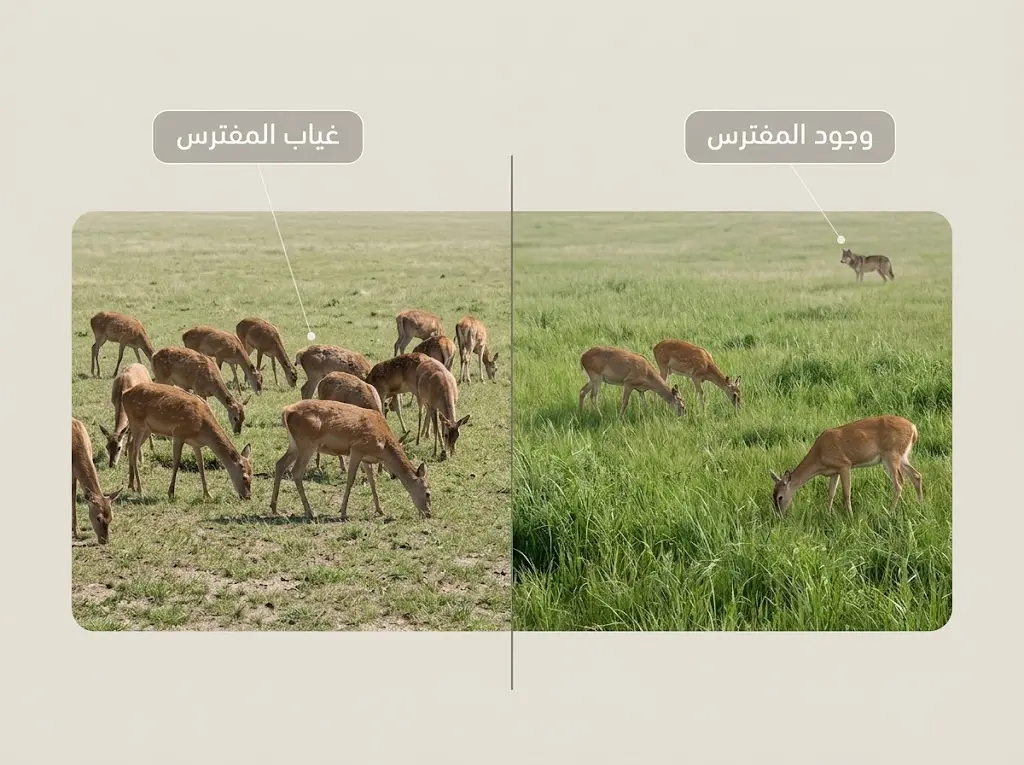
الصورة التقليدية خط من الأسهم: مفترسات أكثر، فعواشب أقل، فرعي أخف، فنباتات أوفر أو مختلفة التركيب. ويمكن أن تنعكس الأسهم إذا قلّت المفترسات: تزيد العواشب، فيشتد الرعي، فتتراجع النباتات أو يحل مجتمع نباتي آخر محلها. الكتلة الحيوية هنا هي كمية المادة الحية في المستوى الذي نقيسه، لا عدد الأفراد وحده؛ فقد ينقص عدد العواشب ويبقى أثرها كبيرًا إذا كان الأفراد الباقون أكبر حجمًا أو أشد تغذية.
هذه السلسلة نموذج تفسيري، لا نتيجة مضمونة كلما اجتمعت ثلاثة مستويات. قد يعوّض عاشب آخر العاشب الذي نقص، أو يحدّ شحّ المغذي من استجابة النبات مهما خف الرعي، أو يأكل المفترس أكثر من نوع فلا ينصبّ أثره على العاشب الذي نراقبه. العلاقة المباشرة بين المفترس والفريسة شرط لبدء هذا المسار، لكنها لا تضمن وصول الأثر إلى أسفل بالشدة نفسها.
وفي السلاسل البسيطة يتبدل اتجاه الأثر في النبات مع عدد الحلقات. في ثلاث مستويات —مفترس وعاشب ونبات— يكون الأثر غير المباشر للمفترس في النبات موجبًا غالبًا: العواشب أقل، فالنبات أكثر. إذا أضيف فوق ذلك مفترس يأكل المفترس الأول، صار المستهلك الأعلى يُريح العواشب من عدوها، فيشتد الرعي وقد ينقص النبات. القوارت والروابط الأفقية تكسر هذا التناوب المنتظم، لذلك يُستعمل التناوب دليل قراءة لا قاعدة تُفرض على كل شبكة.
التأثير عبر الخوف من المفترسات وتغير سلوك الفرائس
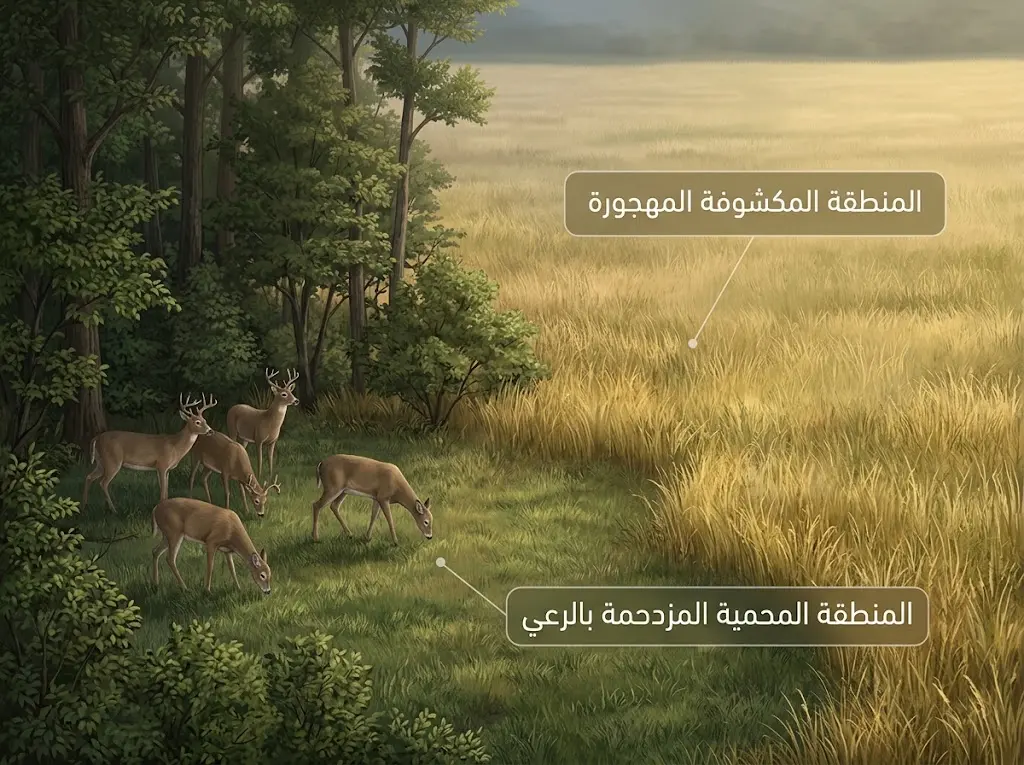
الفريسة لا تنتظر أن تُؤكل حتى تدفع تكلفة المفترس. خطر الافتراس يدفع كثيرًا من الحيوانات إلى ترك المواضع الغنية بالغذاء إذا كانت مكشوفة، أو إلى تقصير مدة الرعي، أو إلى نقل النشاط إلى أوقات يقل فيها لقاء المفترس. النبات في الموضع المتجنَّب يكسب تخفيفًا للرعي، بينما قد يزداد الضغط على موضع آخر تلجأ إليه الفرائس. هكذا يتغير توزيع الأثر في المكان من دون أن تتغير الخريطة الغذائية على الورق.
راجع إيفان برايسر ودانيال بولنيك ومايكل بنارد عام 2005 تجارب قارنت مسار الاستهلاك بمسار الترويع. في المتوسط كان أثر الترويع في ديموغرافيا الفريسة يعادل 63% من حجم الأثر الكلي للمفترس، وأثر الاستهلاك 51%. هاتان النسبتان ليستا حصةً وحصةً تكتملان داخل كل تجربة؛ بل هما متوسطان منفصلان، كل واحد منهما منسوب إلى الأثر الكلي. وعند النظر إلى أثر المفترس في موارد فريسته، أي في الحلقة التالية من السلسلة، خفت آثار الكثافة، بينما بقي أثر السلوك قويًا وبلغ في تقديرهم 85% من الأثر الكلي. وفي جدول الدراسة نفسه كانت نسبة الأثر السلوكي إلى الأثر الكلي في السلاسل ثلاثية المستويات 0.85، ونسبة الأثر العددي 0.33، وذلك في نحو 30 مقارنة، مقابل أكثر من 130 مقارنة في السلاسل الأقصر. نسبة التقديرين الوسطيين تقارب 2.6، وهذا تحويل من الرقمين المنشورين لا قياس جديد، وفترتا الثقة واسعتان، فالمقارنة تصف متوسط الدراسات المشمولة لا كل نظام.
المعنى البيولوجي مباشر: المفترس قد يغيّر قاعدة الشبكة حتى لو أكل قليلًا من الفرائس، لأن معظم الأفراد يعيشون تحت وطأة الخطر لا تحت وطأة الموت. والتحليل نفسه وجد الترويع، في مجموعه، أهم في الأنظمة المائية منه في الأنظمة البرية. هذا متوسط تجريبي لا حكم على كل مفترس. المفترس الذي يطارد فريسة واسعة الحركة على مساحة كبيرة قد يترك أثرًا عدديًا أوضح من أثر الخوف الموضعي، كما سيظهر في جدل يلوستون.
رقم يستحق الانتباه: في التحليل التلوي الذي نشره برايسر وزملاؤه عام 2005، لم يضعف أثر الخوف عند الانتقال إلى موارد الفريسة كما ضعف أثر القتل. بقي المسار السلوكي قريبًا من 85% من الأثر الكلي للمفترس في تلك المقارنات ثلاثية المستويات، فيما هبطت نسبة المسار العددي إلى نحو الثلث. التجارب أقل عددًا في هذا المستوى، فلا يُقرأ الرقم كأنه ثابت طبيعي.
كيف تنتقل التأثيرات من مستوى غذائي إلى المستوى الذي يليه؟
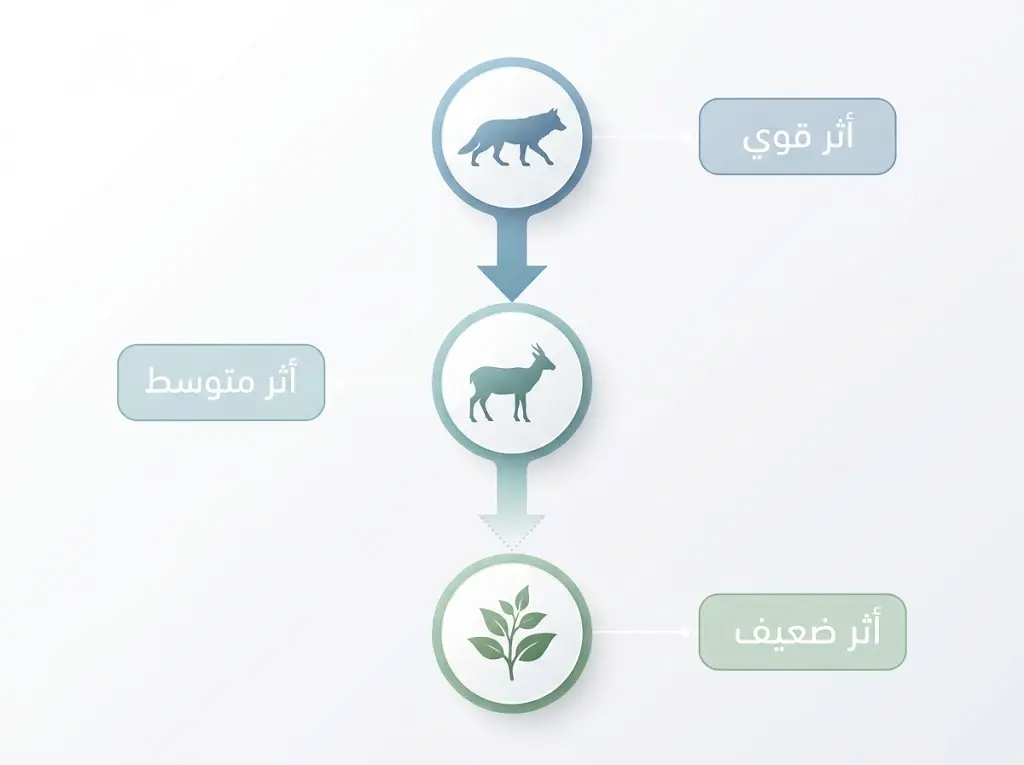
كل حلقة تنقل جزءًا من التغير لا نسخته الكاملة. إذا أنقص المفترس العواشب، توقف مقدار ما يصل إلى النبات على شدة الرعي أصلًا، وعلى وجود عواشب لم يشملها الافتراس، وعلى قدرة النبات على التعويض بإعادة النمو. لذلك يصف الباحثون كثيرًا من الشلالات بأنها تخفت عند السطح الفاصل بين العاشب والنبات: أثر المفترس في العاشب كبير ومتفاوت، وأثره غير المباشر في النبات أضعف أو أقل انتظامًا.
وقد يغيّر الاتجاه لا الشدة فقط. تخفيف الرعي يفيد نباتًا مستساغًا، وقد يضر نوعًا آخر كان ينجو لأن الرعي كان يكبح منافسه. والشبكة التي تكثر فيها المسارات البديلة تمتص الصدمة؛ فالقارت الذي يجد غذاءً آخر لا يواصل الضغط نفسه على النوع الذي نقص. لا يلزم، ولا يُتوقع دائمًا، أن يبلغ الشلال قاعدة الشبكة بالقوة التي بدأ بها.
هل تكون آثار الشلال الغذائي إيجابية أم سلبية؟
الإشارة تتوقف على المتغير الذي نقيسه وعلى الكائن الذي نسأل عنه. انخفاض جماعة عاشبة قد يحسّن تجدد شجرة، ويقلل في الوقت نفسه غذاء مفترس آخر أو كائنًا كان يعتمد على الموطن المفتوح الذي يصنعه الرعي. زيادة العوالق النباتية قد تعني إنتاجًا أوليًا أعلى، وقد تعني أيضًا ماءً أقل صفاءً وظروفًا أسوأ لكائنات القاع. وصف الشلال بأنه «إيجابي» لمجرد أن النبات زاد يخلط بين متغير واحد وصحة المنظومة كلها.
وليس الشلال الغذائي خدمة تؤديها المفترسات للنباتات. هو نمط سببي يمكن أن يحمي غابة من الطحالب الكبيرة في مكان، ويرافق تدهورًا أو تبدلًا غير مرغوب فيه إذا أُزيل المفترس أو إذا انقلب ترتيب المستويات. الحكم التطبيقي يحتاج إلى تحديد ما نريد حفظه: شجرة، أم مصيدًا، أم صفاء ماء، أم تنوعًا أوسع.
ما أنواع الشلالات الغذائية، وما المفاهيم المرتبطة بها؟
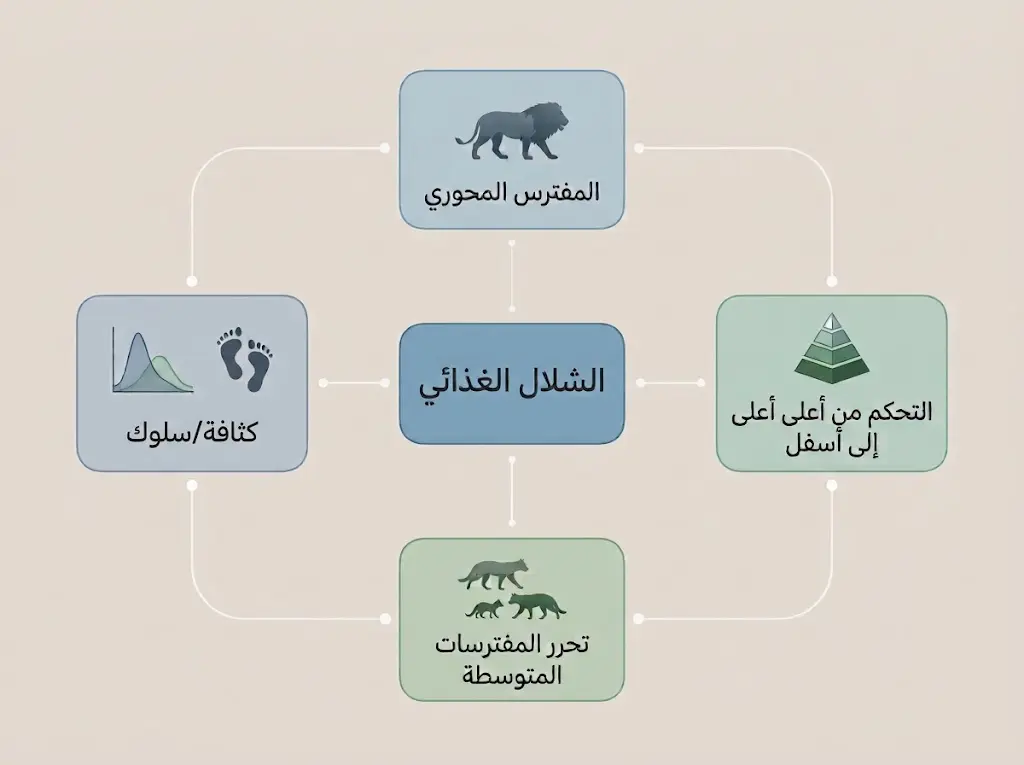
لا تجمع الأدبيات على قائمة مغلقة من الأنواع. التقسيمات التالية أدوات قراءة، وحدودها الاصطلاحية تتغير بين الدراسات، واستعمالها هنا لتمييز أوجه الظاهرة لا لفرض تصنيف عالمي.
الشلال ذو المستويات الثلاثة هو النموذج الذي يضم مفترسًا وعاشبًا وموردًا. كثير من تجارب البرك والأقفاص بُنيت على هذا الطول لأنه يمكن إغلاقه ومراقبة نهايته. غير أن السلاسل الطبيعية تمتد إلى أربعة مستويات أو أكثر، كسمكة مفترسة تأكل سمكة آكلة للعوالق، وهذه تأكل عوالق حيوانية، وتلك ترعى عوالق نباتية. كلما طالت السلسلة زادت المواضع التي يمكن أن يخفت فيها الأثر أو ينعكس، وزادت صعوبة نسب التغير النهائي إلى المفترس الأعلى وحده.
والشلالات التي تتوسطها الكثافة غير التي يتوسطها السلوك، لكنهما ليستا خانتين مانعتين. الجماعة نفسها قد تنقص عددًا، وينكمش رعي الأفراد الباقين لأنهم يتجنبون مواضع الخطر. إسقاط أحد المسارين لأن الآخر ظاهر يفوّت جزءًا من الآلية. العكس صحيح أيضًا: إثبات أن الفرائس خائفة لا يلغي أن أعدادها تغيرت، ولا يغني عن قياس الوزن النسبي للمسارين.
وهناك فرق بين شلال يمس نوعًا أو مجموعة ضيقة من الأنواع، وشلال يبلغ المجتمع الأوسع فيغيّر تركيب الأنواع أو الكتلة الحيوية لطبقات كاملة. زيادة ارتفاع شجيرات في مواقع معينة ليست بالضرورة تبدلًا في تنوع الغابة، وتراجع قنفذ بحر واحد قد لا يعني تعافي كل الطحالب إذا بقيت قنافذ أخرى أو أسماك راعية. الدراسات لا ترسم حدًا موحدًا بين «أثر نوعي» و«أثر مجتمعي»، فالمقارنة بين ورقة وأخرى تحتاج إلى معرفة ما قيس فعلًا: نوع، أم مجموعة وظيفية، أم كتلة المستوى كله.
يرتبط الشلال الغذائي بالتحكم من أعلى إلى أسفل (top-down control)، أي بتأثير المستويات العليا في المستويات الدنيا، لكنه ليس اسمًا آخر لكل تأثير من هذا النوع. قد يتحكم مفترس بفريسته تحكمًا مباشرًا من دون أن يمتد الأثر إلى النباتات. الشلال هو الامتداد غير المباشر نزولًا، لا مجرد وجود ضغط افتراس. وفي المقابل يعمل التحكم من أسفل إلى أعلى (bottom-up control) حين تحدد المغذيات والضوء والإنتاجية الأولية مقدار ما يستطيع كل مستوى أعلى أن يبلغه. النظام الواحد يخضع غالبًا للاتجاهين معًا: المغذيات ترسم سقف الإنتاج، والمفترسات تعيد توزيع من يحصل على هذا الإنتاج. تقوية المغذيات لا تلغي الشلال بالضرورة، وقد تغير موضعه أو حجمه بحسب أي مستوى كان محدودًا أصلًا.
اقرأ أيضاً: الدورات البيوجيوكيميائية: نقل العناصر الأساسية في الأنظمة البيئية
ويجاور هذه المفاهيم تحرر المفترسات المتوسطة (mesopredator release). إذا تراجعت المفترسات العليا، قد تزيد مفترسات المرتبة الوسطى لأنها لم تعد تُفترس أو تُقيَّد بالقدر نفسه، ثم ينتقل هذا الازدياد إلى فرائسها. الظاهرة تشترك مع بعض مسارات الشلال في نقطة البداية، وهي تغير المفترس الأعلى، لكنها ليست مرادفًا له. الشلال الغذائي يتجه نزولًا عبر التغذية؛ أما تحرر المفترسات الوسطى فقد يغيّر مجموعة المفترسات نفسها قبل أن يبلغ العواشب أو النباتات. من الشواهد الميدانية المبكرة دراسة كروكس وسولي عام 1999 في Nature، وقد ربطت بين غياب القيّوط في بقايا موائل مفتتة بجنوب كاليفورنيا وازدياد مفترسات أصغر وآثار ذلك في الطيور. يُستعمل المثال هنا بوصفه مسارًا متصلًا، لا بوصفه شلالًا غذائيًا نباتيًا مكتمل القياس.
والمفترس ذو الدور المحوري (keystone predator) مفهوم قريب لا يطابق الشلال. وصفه باين لكائن يكون أثره في المجتمع أكبر بكثير مما توحي به وفرته. ثعلب البحر يُذكر غالبًا في الخانتين: أثره كبير نسبةً إلى عدده، وهذا يبرر وصف الدور المحوري حيث تثبت المقارنة، وامتداد هذا الأثر إلى الطحالب عبر القنافذ هو الشلال. يمكن لمفترس أن يطلق شلالًا من دون أن يكون أثره أكبر من وفرته، ويمكن لكائن محوري أن يغيّر المجتمع بآلية ليست شلالًا غذائيًا خالصًا، كفتح المساحة لمنافسين عند إزالة نوع مسيطر.
أمثلة موثقة على الشلالات الغذائية في النظم البيئية
ثعالب البحر وقنافذ البحر وغابات عشب البحر
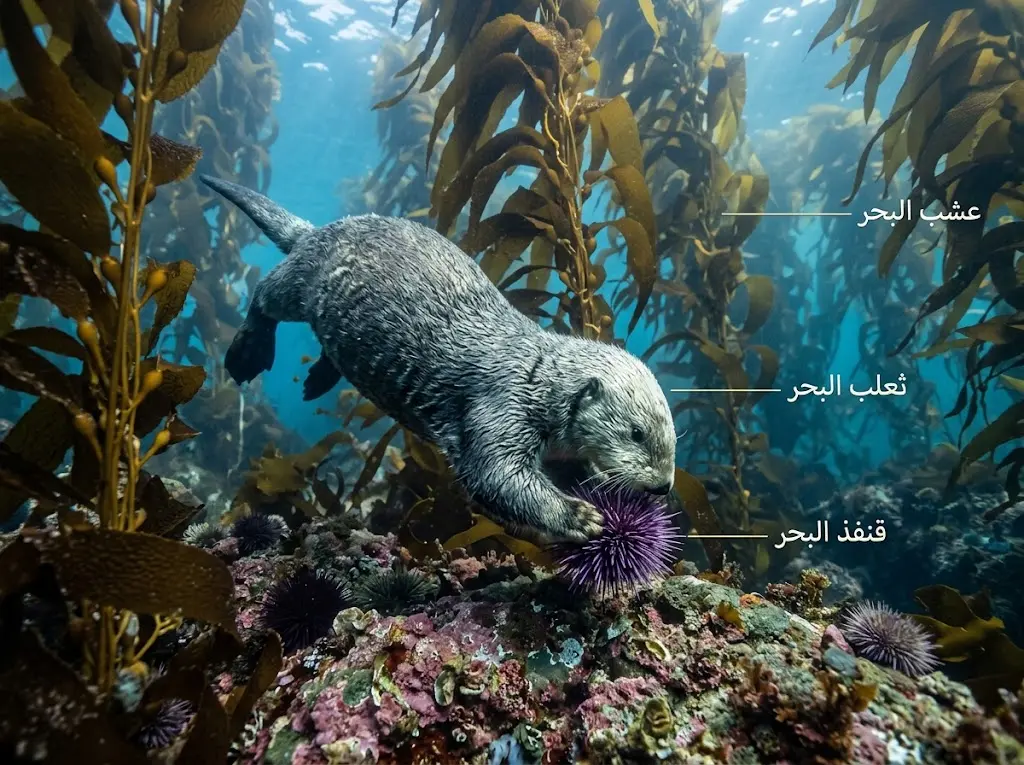
ثعلب البحر (Enhydra lutris) مفترس يأكل اللافقاريات القاعية، ومنها قنافذ البحر. والقنافذ ترعى الطحالب الكبيرة التي تكوّن غابات عشب البحر. وعشب البحر في هذا السياق ليس نباتًا مزهرًا من الأعشاب البحرية؛ بل اسم شائع لطحالب بنية كبيرة تصنع موائل كثيفة في المياه الساحلية الباردة. المسار إذن ثلاثي: الثعلب يضغط على القنفذ، والقنفذ يضغط على الطحلب، فحماية الثعلب للطحلب حماية غير مباشرة.
من الشواهد المؤسسة مقارنة جيمس إستس وجون بالميسانو عام 1974 بين جزر في غرب الألوشيان يوجد فيها ثعلب البحر وأخرى يغيب عنها. حيث غاب الثعلب زادت اللافقاريات العاشبة واشتد الرعي، وانتهى ذلك إلى تهديم تجمعات الطحالب الكبيرة. وحيث وُجد الثعلب بقيت هذه التجمعات أوضح. المقارنة مكانية، وتشير إلى أن إزالة الثعلب لا تزيل مفترسًا من قائمة الأنواع فحسب، بل تعيد ترتيب المجتمع الساحلي.
غير أن قوة هذا الشلال ليست واحدة على امتداد مجال الثعلب. حلّل رايان لانغندورف وزملاؤه، وفيهم إستس، سجلّين يمتد كل منهما نحو ثلاثين عامًا خلال إعادة استعمار ثعالب البحر: أحدهما على الساحل الغربي لجزيرة فانكوفر في كولومبيا البريطانية، والآخر حول جزيرة سان نيكولاس في كاليفورنيا. في الشمال ظهرت صورة الشلال المألوفة؛ فوصول الثعالب رافقه نفاد سريع للقنافذ وتعافٍ لعشب البحر. في الجنوب كان الشلال أخفت، وتعايشت الثعالب والقنافذ وعشب البحر بكثافات متوسطة عدة سنوات. ووجد الباحثون أن متوسط أثر الثعالب في القنافذ، ومتوسط أثر القنافذ في عشب البحر، لم يكونا أقوى في الشمال. ما اختلف هو نبضة قصيرة من الافتراس الشديد بعد إعادة الاستعمار في فانكوفر، لم تقابلها نبضة مماثلة عند سان نيكولاس. وفي الجنوب كانت سلاسل التفاعل الأطول، النابعة من التنافس بين الأنواع، أقدر على تخفيف أثر الثعلب.
لماذا لا يفسر متوسط قوة الافتراس اختلاف الشلال بين مكانين؟
يميل الشرح المختصر إلى معاملة الشلال كمعامل ثابت: المفترس يخفض فريسته بنسبة معتادة، والفريسة تخفض النبات بنسبة معتادة، فتتكرر النتيجة حيثما اجتمعت الأنواع. تحليل عام 2025 لثلاثين عامًا من بيانات غابات عشب البحر يضعف هذه الصورة. الموقع الذي تعافى بسرعة لم يكن صاحب المتوسط الأقوى في العلاقتين المركزيتين، بل الموقع الذي شهد نبضة افتراس قوية عابرة، فيما خففت التفاعلات التنافسية المتعددة في الموقع الآخر أثر المفترس المحوري. توقع الشلال يحتاج إلى معرفة كيف تتغير شدة التفاعل مع تغيّر حالة المجتمع، لا إلى معرفة متوسط هذه الشدة وحده.
الذئاب والأيائل وأشجار الحور الرجراج في متنزه يلوستون
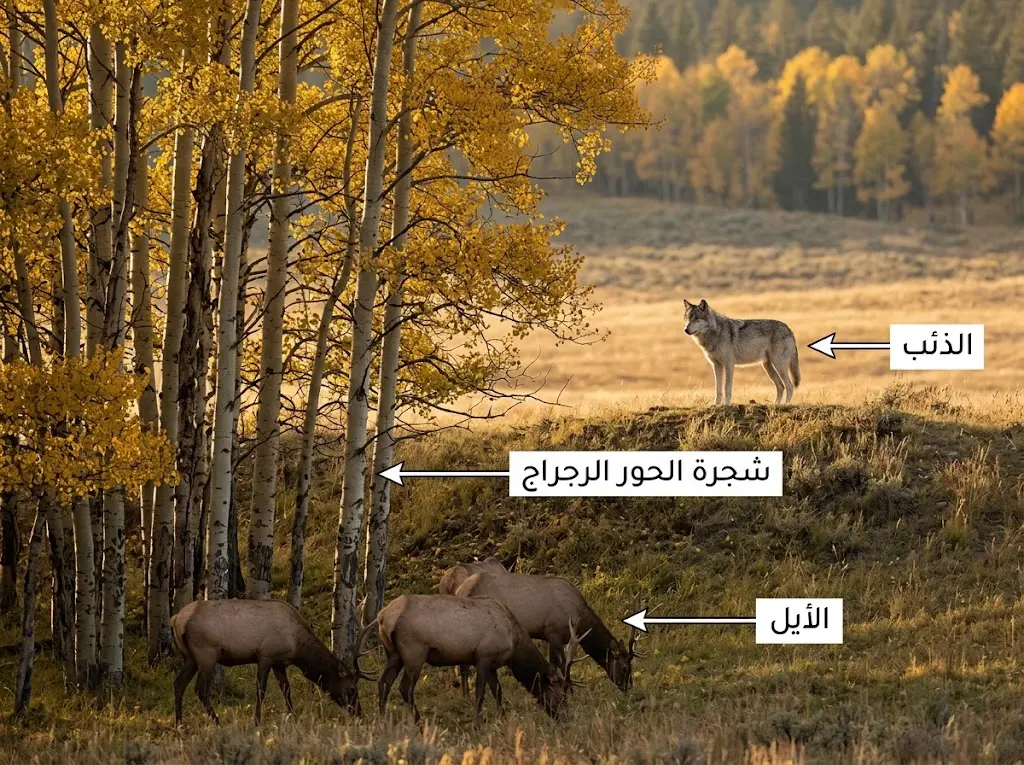
أُعيد إدخال الذئب الرمادي (Canis lupus) إلى متنزه يلوستون الوطني في شتاء 1995–1996، بعد غياب دام عقودًا. وتربط فرضية شائعة بين هذه العودة وتراجع ضغط الأيائل على النباتات الخشبية، ولا سيما الحور الرجراج (Populus tremuloides). الأيائل المقصودة هي أيائل جبال روكي، وتُذكر في الدراسات الحديثة باسم Cervus canadensis، وفي دراسات أقدم باسم Cervus elaphus للجماعات نفسها قبل شيوع الفصل التصنيفي. الفرضية ليست قولًا واحدًا، بل ثلاث قضايا ينبغي فصلها: أثر الذئاب المباشر في الأيائل، ثم ما إذا كان الذي تغيّر هو عدد الأيائل أو سلوك رعيها أو كلاهما، ثم استجابة الأشجار فعلًا من حيث الرعي والتجدد وارتفاع النباتات الفتية.
القراءة الأكثر تداولًا خارج التخصص تقول إن الخوف من الذئاب أبعد الأيائل عن بعض المواقع، فنجت الأشجار. هذه قراءة سلوكية للشلال. دراسات من متنزه يلوستون ومن خدمة المتنزهات الوطنية الأميركية تعرض الخلاف بوضوح: فريق يرى تحررًا للنباتات الخشبية متزامنًا مع تعافي الذئاب ويفسره بشلال، وفريق يرى أن الانخفاض العددي للأيائل هو المسار الأرجح، وفريق يضيف أن ماء الجداول وشكل المجرى يحدّان التعافي حتى لو خف الرعي. ماثيو كوفمان وزملاؤه نشروا عام 2010 اختبارًا على مستوى المشهد لفرضية الوساطة السلوكية. وجدوا أن فشل تجدد الحور تاريخيًا تفاوت بين المواقع، وأن آخر سنوات التجدد الناجح امتدت من 1892 إلى 1956، وهو نمط أقرب إلى ارتفاع تدريجي في أعداد الأيائل منه إلى انقطاع مفاجئ أعقب اختفاء الذئاب. وفي فترة دراستهم لم تظهر استعادة عامة للحور رغم وجود جماعة كبيرة من الذئاب، ولم يخف أثر رعي الأيائل في المواضع الأعلى خطرًا. هذا لا يلغي مشاهدات لاحقة عن زيادة ارتفاع النباتات حيث قلّ الرعي. ففي 2012، بعد مقارنة 87 موقع حور اختير عشوائيًا ببيانات 1997–1998، وجد لوك بينتر وزملاؤه أن 90% من الحور الفتي كان مرعيًا عام 1998 ولم تتجاوز أي نبتة ارتفاع 200 سم، وهو الارتفاع الذي يبدأ عنده الإفلات من رعي الأيائل، بينما انخفض الرعي عام 2012 إلى 37% في شرق مجال الشتاء و63% في غربه، وظهر حور فتي أطول من 200 سم في 65% من مواقع الشرق. ذلك شاهد على تجدد جزئي متفاوت جغرافيًا، لا على أن الذئاب صانعة كل التغير، ولا على أن المجال كله تعافى بالدرجة نفسها.
وفي عام 2025 نشرت إيلين برايس وزملاؤها في Ecological Monographs متابعة لـ113 موقع حور في شمال يلوستون بين 1999 و2019. من عشرة مؤشرات لخطر افتراس الذئاب، كان لمؤشرين فقط أثر إحصائي يُعتد به في الرعي والتجدد، وهذان الأثران أضعف بثماني مرات إلى 28 مرة من أثر كثافة الأيائل. واستنتج الباحثون أن الشلال، إن نُسب إلى الذئاب، كان في هذه المنظومة عدديًا في المقام الأول لا سلوكيًا، وذلك بالقدر الذي يكون فيه تغير كثافة الأيائل نفسه ناتجًا عن افتراس الذئاب. الجملة الأخيرة قيد لا تفصيل زائد: الدراسة لم تثبت أن الذئاب وحدها صنعت كل هبوط في أعداد الأيائل. الصيد البشري، وتغير المناخ، وتبدل الموائل، والمفترسات الأخرى، وإدارة القطعان، كلها تبقى تفسيرات منافسة أو مكملة. أعدل خلاصة أن تراجع الرعي وزيادة ارتفاع بعض النباتات الفتية وُثقا في أجزاء من النطاق الشمالي، وأن إسهام الذئاب، ومساره العددي أو السلوكي، ما زال موضع تقدير مختلف بين الفرق البحثية. التزامن بين إعادة الذئاب وتغير الأشجار مادة فرضية، لا حكم سببي مكتمل.
اقرأ أيضاً
- الاحتباس الحراري ومستوى سطح البحر: التحدي البيئي القادم
- غازات الاحتباس الحراري: أنواعها، مصادرها، وتأثيرها على المناخ
الأسماك والعوالق النباتية والحيوانية في البحيرات
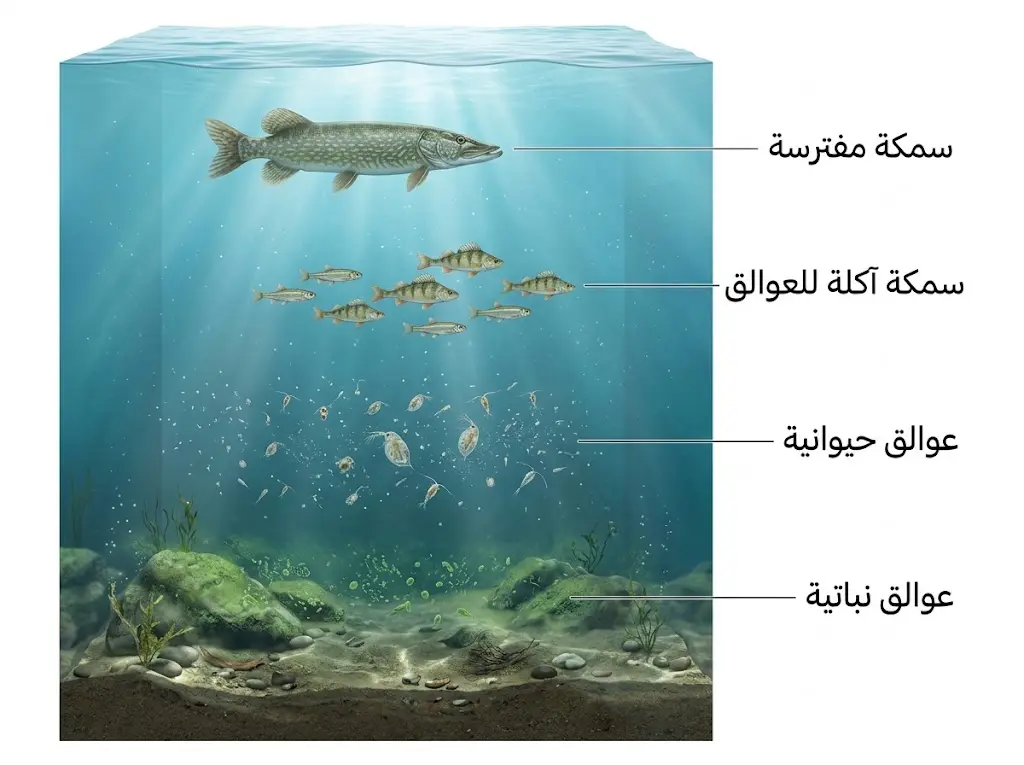
في المياه العذبة صيغت الفكرة على نحو قابل للتجربة. الأسماك التي تأكل العوالق الحيوانية تقلل تلك العوالق، فتضعف رعيها للعوالق النباتية، فترتفع الكتلة النباتية المجهرية. هذا شلال ثلاثي المستويات، وهو غير الاتجاه الذي يُذكر عند الحديث عن الأسماك المفترسة للأسماك. إذا زادت أسماك تفترس الأسماك آكلة العوالق، فقد تقل هذه الأخيرة، فتكثر العوالق الحيوانية، فتنخفض العوالق النباتية ويصفو الماء. الاتجاهان معًا يفسران لماذا تُستعمل الشبكات الغذائية في إدارة البحيرات، ولماذا ينقلب التوقع إذا أُخطئ في تحديد من يأكل من.
جمع مايكل بريت وتشارلز غولدمان عام 1996، في Proceedings of the National Academy of Sciences، أربعًا وخمسين تجربة منفصلة في أقفاص مغلقة وبرك، قاست استجابة العوالق الحيوانية والنباتية لمعاملات تضيف أسماكًا آكلة للعوالق الحيوانية. الاتجاه العام كان واضحًا: هذه الأسماك خفّضت الكتلة الحيوية للعوالق الحيوانية ورفعت الكتلة الحيوية للعوالق النباتية. في مجمل التجارب الأربع والخمسين بلغ وسيط العوالق الحيوانية 29% من قيمة المجموعة الشاهدة، أي إنه هبط إلى أقل من الثلث، وبلغ وسيط العوالق النباتية 176% من الشاهد. ووصف الباحثان خفوت الشلال عند العوالق النباتية بأنه ضعيف، أي إن الأثر وصل إلى هذا المستوى ولم يتلاشَ، غير أن الاستجابة النباتية كانت شديدة الالتواء: قوية في ما يزيد قليلًا على ثلث الحالات، وضعيفة في البقية. وفي مجموعة فرعية من 11 تجربة مكررة ومكتملة التقرير، خفّضت الأسماك العوالق الحيوانية بمقدار 1.4 انحراف معياري، ورفعت العوالق النباتية بمقدار 2.0 انحراف معياري. الانحراف المعياري هنا وحدة أثر إحصائي، لا نسبة مئوية، ولا تُقرأ كما تُقرأ نسب الوسيط.
هذه النتائج تسند وقوع الشلال في شبكات المياه العذبة التجريبية، وتمنع في الوقت نفسه تعميم مقدار واحد. المعالجة التي تضيف أسماكًا مفترسة أو تنزع أسماكًا آكلة للعوالق، أملًا في ماء أصفى، تستند إلى الإطار الذي عرضه ستيفن كاربنتر وجيمس كيتشل وجيمس هودجسون عام 1985: التفاعلات الغذائية المتتالية يمكن أن تنظم إنتاجية البحيرة إلى جانب النيتروجين والفسفور. لكن التواء النتائج يعني أن بحيرات كثيرة لن تجيب الإجابة القوية نفسها. إدارة حلقة واحدة، مع إهمال المغذيات وبقية الشبكة، تعرض النتيجة غير المقصودة التي تحذر منها تجارب البرك أصلًا.
البحر الأحمر: حلقة رعي موثقة، لا شلال مكتمل
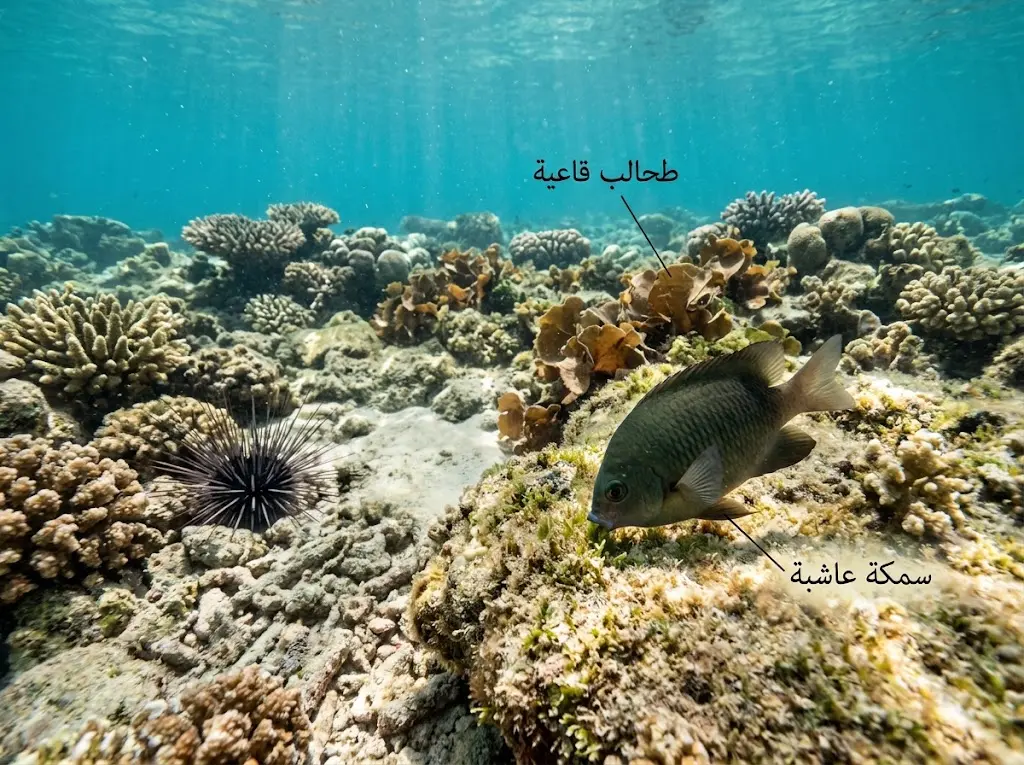
على مسطح شعابي في شمال البحر الأحمر المصري، قاس كريستيان يسن وكريستيان فيلد، في دراسة نُشرت عام 2013 في Marine Ecology Progress Series، أثر العواشب في الطحالب القاعية لأربعة أشهر باستخدام أقفاص إقصاء. حين أُبعدت العواشب كلها زادت الكتلة الجافة للطحالب 17 ضعفًا خلال هذه المدة، وتحول المجتمع من طحالب قصيرة إلى طحالب كبيرة، أبرزها جنس Padina وطحلب Hydroclathrus clathrathus. وكانت الأسماك العاشبة أقل وفرة من قنافذ البحر: 0.6 فرد في المتر المربع، بخطأ معياري للمتوسط قدره 0.1، مقابل 3.4 لقنافذ البحر بخطأ معياري 0.2. ومع ذلك كانت الأسماك، على مستوى الفرد، أكفأ بخمس مرات في خفض الكتلة الجافة للطحالب، وباثنتين وعشرين مرة في خفض ما تنتجه الطحالب ذاتية التغذية من نيتروجين.
قسمة متوسطَي الوفرة المنشورين، 3.4 على 0.6، تعطي نحو 5.7 ضعفًا. هذا حساب من المتوسطين لا نتيجة إضافية في الورقة، والخطآن المعياريان للمتوسطين يعنيان أن النسبة تقريبية. دلالته أن القنافذ كانت أوفر بعدة أضعاف، وأن كفاءة السمكة العاشبة الواحدة كانت أعلى في خفض كتلة الطحالب. التجربة تثبت تحكمًا من أعلى في الطحالب على هذا المسطح: العواشب، ولا سيما الأسماك، تكبح الكتلة والتركيب. وهي لا تثبت شلالًا غذائيًا كاملًا من مفترس للأسماك إلى الطحالب، لأن الحلقة العليا لم تُقس هنا. أطروحة يسن في العام نفسه، عن تجارب في البحر الأحمر المصري والسعودي، عالجت محاكاة الصيد الجائر وإغناء المغذيات، ووجدت أن استبعاد أثر العواشب كان أقوى من محاكاة الإغناء وحده في دفع الطحالب. الخلاصة الإقليمية المنضبطة هي أن حلقة الرعي في الشعاب حلقة حساسة للصيد، وأن بناء شلال ثلاثي فوقها يحتاج إلى قياس ما يفعله صيد المفترسات بأعداد هذه الأسماك وسلوكها، لا إلى افتراض أن كل تراجع في الأسماك العاشبة شلال مكتمل.
اقرأ أيضاً: الحفاظ على البيئة: المبادئ، الاستراتيجيات، والحلول
ماذا تكشف الأمثلة عن اختلاف الشلال بين البيئات؟
الأمثلة الأربعة لا تروي قصة واحدة بأبطال مختلفين. في غابات عشب البحر هناك مفترس ثديي، وعاشب لافقاري، وطحالب كبيرة، وشاهد مكاني قديم، ثم سجل ثلاثيني أظهر أن ديناميكية التفاعل، لا متوسطه، هي التي فرّقت بين موقعين. في يلوستون السلسلة المفترضة برية وخشبية وبطيئة، والأشجار لا تجيب في موسم تجربة واحد، والعوامل المرافقة كثيرة، وأقوى تحليل حديث لوزن الخوف مقابل الكثافة يرجّح الكثافة مع الإبقاء على قيد الإسناد إلى الذئاب. في البحيرات يمكن إغلاق النظام نسبيًا وتكرار المعاملة، لذلك بلغ الدليل التجريبي على اتجاه الشلال حدًا أقوى، بينما بقي مقدار الاستجابة النباتية ملتويًا. وفي البحر الأحمر المصري وُثقت الحلقة السفلى بتجربة إقصاء، وبقيت الحلقة العليا مفتوحة.
وجود مفترس وعاشب ونبات في أكثر من بيئة لا يعني أن شدة الأثر، أو حتى اتجاهه العملي، قابلة للنقل. ما يُنقل هو طريقة السؤال: من يأكل من، وأي مسار يعبر الوسيط، وما الذي يُقاس في كل مستوى، وأي تفسير بديل يبقى قائمًا.
| النظام البيئي | المفترس الأعلى | الحلقة الوسيطة | المتأثر النهائي | أقوى دليل علمي | قوة الاستنتاج |
|---|---|---|---|---|---|
| غابات عشب البحر (ألاسكا وكندا وكاليفورنيا) | ثعلب البحر | قنفذ البحر | عشب البحر (طحالب كبيرة) | مقارنة جزر 1974 وسجل 30 عاماً عام 2025 | قوي لكن متفاوت موقعياً |
| متنزه يلوستون (الولايات المتحدة) | الذئب الرمادي | كثافة وسلوك أيائل جبال روكي | الحور الرجراج | متابعة 113 موقعاً بين 1999 و2019 | جزئي، يرجّح المسار العددي |
| بحيرات المياه العذبة (تجارب متعددة) | سمكة مفترسة للأسماك | سمكة آكلة عوالق ← عوالق حيوانية | عوالق نباتية وصفاء الماء | تحليل تلوي لـ 54 تجربة عام 1996 | قوي اتجاهياً |
| شعاب البحر الأحمر (مصر) | غير مقيس في التجربة | سمكة عاشبة وقنفذ بحر | طحالب قاعية | تجربة إقصاء ميدانية لأربعة أشهر عام 2013 | حلقة رعي فقط، لا شلال مكتمل |
ما العوامل التي تحدد قوة الشلال الغذائي؟
ماذا يتبقى من الأثر حين تُقارن الأنظمة لا القصص؟
الأرقام الآتية منشورة في دراساتها، والتحويلات الحسابية المشار إليها من عمل هذا المقال على تلك الأرقام، لا قياسات ميدانية جديدة.
| المقارنة | ما جُمع | النتيجة كما نُشرت | القراءة المنضبطة |
|---|---|---|---|
| بريت وغولدمان، 1996 | 54 تجربة برك وأقفاص في المياه العذبة | وسيط العوالق الحيوانية 29% من الشاهد، والنباتية 176%؛ والاستجابة النباتية قوية في ما يزيد قليلاً على الثلث | الاتجاه ثابت في مجموعه، والمقدار غير مضمون في كل مسطح مائي |
| شورين وزملاؤه، 2002 | 102 تجربة حقلية موزعة على ستة أنظمة بيئية | أقوى الآثار في قاع المياه الراكدة والقاع البحري، وأضعفها في العوالق البحرية والشبكات البرية | الفرق بين الأنظمة المائية نفسها بحجم الفرق بين الماء واليابسة |
| لانغندورف وزملاؤه، 2025 | سجلّان ميدانيان لمدة 30 عاماً لغابات عشب البحر | شلال واضح عند جزيرة فانكوفر، وأخفت عند سان نيكولاس، من دون أن يكون المتوسط أقوى في الشمال | حالة المجتمع ومسار التفاعل عبر الزمن يغيّران النتيجة أكثر من متوسط الشدة |
في مقارنة جوناثان شورين وزملائه عام 2002، المنشورة في Ecology Letters، تراوح متوسط لوغاريتم نسبة الاستجابة لأثر المفترسات في الكتلة الحيوية للمنتجين الأوليين، داخل الأنظمة المائية، من 1.54 في القاع البحري، بفترة ثقة 0.87، إلى 0.17 في العوالق البحرية، بفترة ثقة 0.22. إذا حُوّل لوغاريتم النسبة إلى مضاعف تقريبي، فإن 1.54 يقابل نحو 4.7 أضعاف، و0.17 يقابل نحو 1.2 ضعف. هذا تحويل من القيم المنشورة، وفترات الثقة واسعة، فلا يُقرأ المضاعف كأنه مقدار ثابت لكل ساحل أو كل عمود ماء. المهم في الرقمين أن أنظمة مائية تقع عند طرفين متباعدين. ووجد التحليل أيضًا أن أثر المفترس في العواشب كان في العادة أكبر وأكثر تباينًا من أثره في النباتات، أي إن الشلال كثيرًا ما يخفت عند الحد بين النبات والعاشب. والتحكم من أعلى في الكتلة النباتية كان أقوى في الماء منه على اليابسة في تلك المجموعة من التجارب، لكن الفروق بين خمس شبكات مائية بلغت مقدار الفروق بين الرطب والجاف. الجملة الأخيرة تمنع استعمال «الماء أقوى من البر» ذريعة لتعميم بحري على بحيرة، أو لتعميم بحيرة على قاع بحر.
ويظهر من التواء تجارب 1996 أمر إداري لا يظهر في الوسيط وحده. إذا كانت الاستجابة النباتية القوية محصورة في ما يزيد قليلًا على ثلث الحالات، والضعيفة في البقية، فإن اعتماد الوسيط أو المتوسط لتوقع كل بحيرة يخطئ شكل البيانات. الوسيط يصف ميل المجموعة، ولا يَعِد كل مسطح بنتيجة المجموعة.
قوة العلاقة بين المفترس والفريسة
لا تكفي وفرة المفترس. معدل الافتراس، وتوافر الفريسة البديلة، وكفاءة الصيد، وقدرة الفريسة على التعويض بالتكاثر أو بالهجرة، كلها تحدد كم من تغير الكثافة يتحقق فعلًا. جماعة مفترسة كبيرة قد تأكل قليلًا إذا كانت الفريسة نادرة أو محمية بالملاذ، وجماعة أصغر قد تُحدث أثرًا واسعًا إذا صادفت فريسة مكشوفة وبطيئة التعويض. لذلك يُفصل بين عدد الأفراد وشدة التفاعل. دراسة غابات عشب البحر عام 2025 مثال على فصل من هذا النوع: المتوسط لم يفسر اختلاف المسار، والنبضة العابرة فسرت أكثر.
تنوع الشبكة الغذائية وكثرة المسارات البديلة
القوارت، وتعدد المفترسات، وتنوع الفرائس، وقدرة كائن على الانتقال بين مصادر الغذاء، تفتح طرقًا جانبية تمتص الأثر أو تحوله. إذا نقص عاشب فانتقل مفترسه إلى عاشب ثانٍ، فقد ينجو النبات الأول ثم يتضرر النبات الذي يعيش عليه العاشب الثاني. وإذا تقاسم عدة مفترسات فريسة واحدة، فأُزيل أحدهم، قد يعوّض الآخرون جزءًا من الاستهلاك. تعقيد الشبكة الغذائية ليس زينة وصفية؛ هو سبب رئيس لضعف التعميم من سلسلة مرسومة بثلاثة أسهم إلى مجتمع حقيقي.
خصائص المفترس وسلوك الفريسة
طريقة الصيد تغيّر نوع الأثر غير المباشر. المفترس الذي يتربص في مواضع يمكن للفريسة أن تتعرّفها قد يصنع خريطة خطر تتجنبها العواشب، فيتوزع الرعي توزيعًا مكانيًا. والمفترس الذي يطارد على مدى واسع، في موائل تستعملها الفريسة كلها، يترك فرصة أقل لهذا التجنب الموضعي، فيصبح خفض العدد أوضح من إعادة توزيع السلوك. مجال حركة الفريسة مهم بالقدر نفسه: الحيوان الواسع التجوال يصعب ربط بقائه في بقعة واحدة بدرجة الخطر فيها. يلوستون، في قراءة برايس وزملائها، أقرب إلى هذه الحالة الثانية. والتجارب التي لخصها برايسر وزملاؤه تذكّر بأن الحالة المعاكسة، أي سيادة الخوف، موجودة وقوية في أنظمة أخرى، ولا سيما مائية. الصفتان لا تلغي إحداهما الأخرى على مستوى النظرية؛ كل واحدة تغلب في سياقها.
المغذيات والحرارة والإنتاجية الأولية
وفرة المغذيات ودرجة الحرارة والإنتاجية الأولية تغيّر حجم التفاعل الغذائي لأنها تغيّر سرعة النمو وكمية الغذاء وشدة المنافسة. نبات محدود بالنيتروجين أو بالضوء قد لا يستجيب لتحريره من الرعي إلا استجابة ضئيلة، وعوالق نباتية في ماء غني بالمغذيات قد تنفجر إذا خف الرعي. الحرارة تغيّر معدلات الأيض لدى المفترس والفريسة، فلا يبقى معدل اللقاء والهضم ثابتًا بين موسم وموسم. لا يوجد في هذه العوامل عامل واحد يضبط قوة الشلال في الغابة والشعاب والبحيرة معًا. السؤال الميداني هو: أي حدٍّ كان فعالًا في هذا النظام خلال فترة القياس، الحد الأعلى الآتي من المفترس أم الحد الأدنى الآتي من المورد؟
اقرأ أيضاً: الديناميكا الحرارية: المفهوم، القوانين، والتطبيقات
المكان والزمن والاضطرابات البيئية
الشلال ظاهرة في مكان وزمن، لا خاصية دائمة للنوع. اختلاف المواقع في دراسة الثعالب بلغ حد اختلاف نوع الاستجابة، لا اختلاف درجتها فحسب. والتغير الموسمي ينقل الفرائس بين الموائل، والحرائق وتغير الموائل والصيد وشق الطرق تزيل المفترس أو تزيل قدرة النبات على التجدد حتى لو خف العاشب. في يلوستون، بقي هيدرولوجيا المجاري المائية تفسيرًا منافسًا لتعافي النباتات النهرية؛ فالشتلة لا تصبح شجرة إذا لم يتوافر الماء والموئل حتى مع انخفاض الرعي. الاضطراب البشري قد يصنع شلالًا، بإزالة المفترسات العليا، وقد يمحو شروط ظهوره، إذا حوّل القاع أو قطع التجدد.
لماذا لا يمتد الشلال الغذائي بالقوة نفسها عبر جميع المستويات؟
لأن كل مستوى تحرسه قيود غير قيد المستوى الذي فوقه. تعويض الفرائس بالتكاثر، وتبديل الغذاء، والتنافس داخل المستوى نفسه، والتغذية الراجعة من الموارد، والحد الفيزيائي للموئل، كلها تقصّ الأثر أو تعيد توجيهه. التخافت الذي وصفته مقارنة الأنظمة الستة، والالتواء الذي أظهرته تجارب البحيرات، والنبضة العابرة التي فرّقت بين موقعي ثعلب البحر، ثلاثة تجليات لفكرة واحدة: السلسلة المرسومة على الورق أطول وأصفى من السلسلة العاملة في الحقل.
كيف تؤثر الشلالات الغذائية في النظم البيئية وإدارتها؟
أثرها في بنية المجتمع البيئي والتنوع الحيوي
حين يمتد الأثر غير المباشر، تتغير وفرة الأنواع وتوزيعها وعلاقاتها، لا حلقة الافتراس وحدها. غابة طحالب كثيفة تحمل مجتمعًا غير المجتمع الذي يعيش على قاع جردته القنافذ، وبحيرة صافية غير بحيرة تغلب عليها العوالق النباتية. لكن لا يلزم أن يزيد كل شلال التنوع البيولوجي. كبح العواشب قد يرفع سيادة نبات سريع النمو ويقلل أنواعًا كانت تجد فراغًا في ظل الرعي. الحكم على التنوع يحتاج إلى معرفة أي مجموعة تُعدّ، وفي أي مقياس زماني، لا إلى افتراض أن المفترس الأعلى صانع تنوع بالتعريف.
أثرها في الغطاء النباتي والموائل
ضغط الرعي يتحكم في بقاء البادرات وارتفاعها وفي بقاء الطحالب الكبيرة على القاع. في السواحل الباردة، الفرق بين غابة عشب البحر والقاع المقفر فرق في الموئل لا في منظر النبات فقط؛ فالغابة تأوي أسماكًا ولافقاريات لا يجد كثير منها ملجأ في القاع العاري. وفي المسطحات الشعابية يظهر من تجربة البحر الأحمر المصري أن إقصاء العواشب لأربعة أشهر كان كافيًا لمضاعفة الكتلة الجافة للطحالب سبع عشرة مرة على موقع الدراسة، مع تبدل التركيب نحو طحالب أكبر. وفي المراعي والغابات المعتدلة، تجدد الأشجار الخشبية أبطأ، لذلك لا تُنقل مدة التجربة المائية إلى حكم على غابة. الرعي المستمر لسنوات يمنع الشتلة من تجاوز ارتفاع فم العاشب، حتى لو كانت البذور حاضرة.
أثرها في الإنتاجية الأولية والعمليات البيئية
بعض الشلالات يغيّر الكتلة الحيوية النباتية، كما في وسيط العوالق النباتية الذي بلغ 176% من الشاهد في تجارب المياه العذبة. وبعضها يغيّر صفة الموئل، ككثافة عشب البحر. وامتداد الأثر إلى دورة المغذيات ممكن حين تتغير كمية المادة الحية ومواضع تراكمها، غير أنه لا يُفترض في كل شلال ولا بالمقدار نفسه. الإنتاجية الأولية هي معدل بناء المنتجات الأولية للمادة الحية، وهي غير الكتلة الحيوية القائمة؛ فقد ترتفع الكتلة لأن الاستهلاك قلّ لا لأن معدل الإنتاج زاد. كل ربط بين الشلال وعملية بيئية ينبغي أن يسمي ما قيس: كتلة، أم معدل إنتاج، أم تركيب مجتمع، أم تدفق مغذٍ.
الشلالات الغذائية وإدارة مصايد الأسماك
في البحيرات، العلاقة بين الأسماك المفترسة والأسماك الصغيرة والعوالق أداة لفهم لماذا يخضرّ الماء أو يصفو بعد تغير تركيب المصيد. زيادة الأسماك آكلة العوالق الحيوانية، سواء بالصيد الانتقائي لمفترساتها أو بإطلاقها، تدفع الشلال نحو عوالق حيوانية أقل وعوالق نباتية أكثر، بحسب اتجاه تجارب 1996. وزيادة المفترسات العليا قد تدفعه عكس ذلك، وهذا منطق المعالجة الحيوية التي نوقشت منذ منتصف الثمانينيات. القيد العملي من البيانات نفسها: الاستجابة النباتية القوية لم تكن حال أغلب التجارب. من يدير بحيرة بعلاقة غذائية واحدة، ويهمل حمل المغذيات ومسارات القوارت والفرق بين المواسم، يخاطر بنتيجة لم تتنبأ بها الحلقة التي بنى عليها قراره. والمبدأ نفسه يسري على المصايد البحرية. إزالة المفترسات قد تُريح فرائسها فينقلب الضغط على ما دونها، لكن الشبكات البحرية المفتوحة أصعب إغلاقًا من البركة التجريبية، والتعويض بالهجرة فيها أكبر.
استعادة المفترسات العليا وحماية النظم البيئية
حماية المفترس أو إعادته يمكن أن تعيد عملية بيئية غابت مع غيابه، إذا كانت تلك العملية محدودة به فعلًا، وإذا بقيت بقية الشروط قائمة. تعافي غابات عشب البحر بعد عودة ثعالب البحر في بعض السواحل هو أوضح حالات هذا النوع، لا لأنها قصة مؤثرة، بل لأن مسار القنفذ والطحلب قيس، ولأن المقارنة بين وجود الثعلب وغيابه تكررت. وحتى في هذه الحالة بقي النجاح متفاوتًا بين جزيرة فانكوفر وسان نيكولاس. النجاح يتوقف على الموئل، وعلى وجود الفريسة الوسيطة بالكثافة التي تجعل التفاعل فعالًا، وعلى ألا يكون اضطراب آخر قد أزاح المجتمع إلى حالة لا تكفي إزالة سبب واحد لقلبها.
لماذا لا تكفي إعادة المفترس لاستعادة النظام البيئي؟
لأن الحلقة الوسيطة قد تكون قد تغيرت، ولأن قاعدة الشبكة قد فقدت قدرتها على الإجابة. جماعة العواشب قد تكون أكبر، أو أجرأ، أو مختلفة التركيب، فلا يعيدها افتراس بالمعدل القديم إلى عتبة الرعي السابقة. والنبات قد يفقد مصدر البذور، أو الماء، أو القاع المناسب، كما تذكّر مناقشة المجاري المائية في يلوستون. وقد يكون الصيد أو التلوث أو تغير الحرارة قد أنشأ مسارًا موازيًا يصنع المشهد نفسه الذي يُنسب إلى المفترس. إعادة المفترس تجربة ضرورية أحيانًا، لكنها لا تختصر استعادة النظام. من غير قياس الوسيط، وقياس استجابة القاعدة، وفحص التفسيرات البديلة، تبقى العودة إجراءً مفتوح النتيجة.
كيف يختبر العلماء وجود الشلال الغذائي؟
ما الدليل الذي يدعم وجود شلال غذائي؟
الدليل مسار، لا اقتران. يُطلب أن يُظهر التغير عند المفترس، ثم عند الوسيط الذي يأكل أو يُؤكل، ثم عند المستوى الأدنى، مع آلية تربط الحلقات: معدل افتراس، أو معدل رعي، أو تبدل استعمال الموطن. ملاحظة أن نوعًا زاد بعد أن نقص نوع آخر تصلح لبناء فرضية، ولا تكفي لإغلاقها إذا كان المناخ أو المغذيات أو الصيد أو التعاقب الطبيعي يستطيع صناعة النمط نفسه. قوة الاستنتاج تُضبط على قوة التصميم. التجربة التي تضيف المفترس وتمنع عنه بقية العوامل أعلى من السجل الزمني الذي تتغير فيه عشرة أشياء معًا. وحين تبقى تفسيرات بديلة معقولة، يبقى الادعاء مشروطًا لا نهائيًا.
اقرأ أيضاً
التجارب التي تضيف المفترسات أو تستبعدها
الأقفاص والبرك والأحواض والمساحات التي يُستبعد منها مفترس أو عاشب تسمح بعزل حلقة من الشبكة. تجارب البحيرات الأربع والخمسون من هذه العائلة، وتجربة إقصاء العواشب على المسطح الشعابي المصري كذلك. ميزة التجربة أن المجموعة الشاهدة تقارَن بمعاملة محددة. قيدها أن جدران القفص تغيّر التيار والظل وحركة الكائنات، وأن المدة القصيرة تلتقط الطحالب والعوالق أسرع مما تلتقط شجرة تحتاج إلى سنوات لتجاوز ارتفاع الرعي. التجربة المحكمة على نطاق صغير لا تُلغى لهذه القيود، ولا تُعمم على متنزه أو ساحل كامل من غير سلم مكاني أوسع.
المراقبة طويلة الأمد والمقارنة بين المواقع
السجل الممتد يرى ما لا تراه تجربة موسم واحد: النبضة العابرة، والتعافي البطيء، والارتداد بعد اضطراب. المقارنة بين مواقع يوجد فيها المفترس وأخرى يغيب عنها، كما في الألوشيان عام 1974، تعطي قوة شبه تجريبية حين تكون المواقع متقاربة في غير العامل المدروس. وحدها أن المواقع لا تتطابق أبدًا. الاختلاف في التعرض للأمواج، أو في تاريخ الصيد، أو في قاعدة المغذيات، يظل تفسيرًا منافسًا. لذلك تقوى المراقبة حين تُقاس الحلقة الوسيطة لا النتيجة النهائية فقط، وتضعف حين تُقارن صورتان عامتان لمشهدين وتُنسب الفجوة إلى مفترس لم يُحسب معدل افتراسه.
ما المتغيرات التي يقيسها الباحثون؟
يختار الباحث المتغير الذي يناسب الحلقة التي يدّعيها. وفرة الجماعة وكثافتها تجيب عن المسار العددي، والكتلة الحيوية تجيب عن كمية المادة الحية لا عن عدد الأفراد. معدلات الرعي والافتراس تربط العدد بالأثر الفعلي، لأن جماعة كبيرة قد ترعى قليلًا. سلوك التغذية واستعمال الموطن يكشفان المسار الذي يتوسطه الخوف: أين تمكث الفريسة، وكم تطيل الرعي في المكان المكشوف. تجدد النباتات وارتفاعها، لا مجرد وجود أشجار بالغة، هو المقياس المناسب في الغابات البطيئة؛ فشجرة هرمة لا تشهد على شلال وقع هذا العقد. وفي الماء تُقاس وفرة العوالق وأصباغها بوصفها مؤشرات على الكتلة النباتية المجهرية، مع التمييز بين الكتلة والإنتاجية. قياس متغير واحد في أسفل السلسلة، من غير قياس الوسيط، يترك السببية مفتوحة.
كيف تكشف النماذج والتحليلات التلوية العلاقات الغذائية؟
التحليل التلوي يجمع تجاربًا سألت سؤالًا متقاربًا ويعيد تقدير الاتجاه العام وتشتته. هذا ما سمح بالقول إن تجارب المياه العذبة تدعم اتجاه الشلال، وإن قوتها ملتوية، وأن الأنظمة تختلف اختلافًا كبيرًا في مقارنة 102 تجربة. والنماذج، كتلك التي قدرت معدلات التفاعل بوصفها دوال تتغير مع حالة المجتمع لا بوصفها ثوابت، تكشف أن المتوسط قد يخفي النبضة التي صنعت المسار. النتائج المجمعة لا تلغي اختلاف الأنظمة؛ هي الطريقة التي نعرف بها حجم هذا الاختلاف. نقل «متوسط الدراسات» إلى موقع لم يُدرس نقلٌ غير مشروع، خصوصًا إذا كانت فترة الثقة واسعة أو إذا كانت الحالات القوية أقلية.
هل تكفي النظائر المستقرة لإثبات الشلال الغذائي؟
تحليل النظائر المستقرة يقدّر مصادر الغذاء والموضع الغذائي للكائن، لأن أنسجة المستهلك تحمل إشارة من غذائه. ديفيد بوست لخص عام 2002 نماذج تقدير الموضع الغذائي وافتراضاتها: الإشارة تتغير مع الغذاء، ومع خط الأساس البيئي للنظير، ومع حركة الكائن بين موائل تختلف إشارتها. هذه الأداة تقوّي رسم الشبكة: من يحتمل أنه يأكل من، وفي أي مستوى يقع. وهي لا تثبت وحدها أن تغير المفترس هو سبب تغير المستوى الأدنى. نظام غذائي موثّق حلقة في المسار، لا سلسلة سببية كاملة. الاستدلال على الشلال يبقى محتاجًا إلى تغير مقاس عبر المستويات، وإلى تصميم يحدّ من التفسيرات البديلة، سواء كان تجربة أو مراقبة طويلة قارنت المواقع وآلياتها.
وللتجارب القصيرة وجه نقص يقابل نقص النظير. إقصاء أربعة أشهر يكفي لإظهار استجابة الطحالب، ولا يكفي لمعرفة إن كان المجتمع سيستقر على الطحالب الكبيرة أو سيرتد حين تعود الأسماك. ومتابعة الأشجار من غير تجربة إقصاء تترك الرعي والمناخ والماء متشابكين. المنهجيات تتكامل لأن كلًا منها يقصر عن جانب: التجربة تقصر عن المدى الطويل، والمراقبة تقصر عن العزل السببي، والنظير يقصر عن إثبات اتجاه التأثير، والنموذج يقصر عن أي عملية لم تُدخل في بنيته.
كيف تطور مفهوم الشلال الغذائي، وما حدود المعرفة الحالية؟
من العلاقات بين المفترسات والفرائس إلى مفهوم الشلال الغذائي
فكرة أن المفترسات تنظم ما تحتها أقدم من الاسم. في عام 1960 حاجّ هيرستون وسميث وسلوبودكين بأن العالم يبقى أخضر لأن المفترسات والطفيليات تكبح العواشب، فلا تستهلك إنتاج النبات كله. كانت هذه حجة في بنية المجتمعات، لا مصطلح شلال. المفهوم الذي صار لاحقًا «نوعًا محوريًا» نُحت في نهاية الستينيات من تجارب باين على الشواطئ الصخرية، حيث أظهر أن إزالة مفترس يمكن أن تعيد تركيب المجتمع بأكثر مما تتوقعه وفرته. أما عبارة trophic cascade فدخلت التداول العلمي عام 1980 في محاضرة تانسلي التي نشرها باين بعنوان «الشبكات الغذائية: الارتباط وشدة التفاعل والبنية التحتية للمجتمع» في Journal of Animal Ecology. بعدها اتسع الاستعمال حتى صار الاسم يُطلق على آثار غير مباشرة متباينة التعريف، وهو الاتساع الذي حاولت مراجعة 2016 أن تضبطه. لا يحتاج فهم الظاهرة إلى سيرة أصحابها؛ يحتاج إلى التمييز بين تاريخ الفكرة، وتاريخ الاسم، وحدود التعريف المعتمد.
اقرأ أيضاً: لوي باستور: رائد علم الأحياء الدقيقة والمناعة
لماذا يختلف العلماء في تفسير بعض الحالات؟
خلاف يلوستون خلاف على تعريف المسار لا على وجود ذئاب وأيائل وأشجار في المتنزه نفسه. من يعرّف الشلال بأنه أي تعافٍ نباتي أعقب عودة مفترس سيرى في تزامن التجدد دليلًا كافيًا. ومن يشترط أثرًا سلوكيًا للخطر سيختبر خريطة الخطر، وقد لا يجدها، كما في اختبار 2010. ومن يقيس الكثافة على مدى عقدين قد يجد، كما في دراسة 2025، أن كثافة الأيائل تتنبأ بالرعي والتجدد أقوى بكثير من معظم مؤشرات الخطر، ثم يتوقف عند قيد: هل صنعت الذئاب ذلك الهبوط في الكثافة؟ اختلاف الأسئلة يصنع اختلاف الأحكام وإن قرأت الفرق البحثية المشهد نفسه. يضاف إلى ذلك اختلاف اختيار المواقع ومدة القياس وتعريف «التعافي»: ارتفاع شتلة، أم تجاوزها لارتفاع فم الأيل، أم دخولها طبقة الأشجار البالغة. فصل ما قاسته الدراسة عما يُبنى عليه في الرواية العامة هو أصل الخلاف، لا نقص معلومات عابر.
ما الذي نعرفه بثقة، وما الذي يعتمد على السياق؟
ثلاث طبقات تكفي لترتيب المعرفة من غير ادّعاء قائمة مغلقة.
في الطبقة الأولى نتائج مدعومة بتجارب أو بمقارنات ميدانية قوية داخل نظامها: اتجاه الشلال في كثير من تجارب المياه العذبة التي تضيف أسماكًا آكلة للعوالق؛ وقدرة ثعلب البحر، حيث يتحقق مسار القنفذ، على إعادة تشكيل مجتمع الطحالب الكبيرة؛ وكفاءة الأسماك العاشبة في كبح طحالب مسطح شعابي مصري حين تُقارَن بالقنافذ داخل شروط تلك التجربة.
وفي الطبقة الثانية تفسيرات مدعومة يصعب نقلها: تعافي عشب البحر بعد عودة الثعالب قوي في موقع وضعيف في آخر رغم تشابه أبطال القصة؛ وأثر الخوف قد يفوق أثر القتل في مجموعة من التجارب ثم يتراجع أمام الكثافة في منظومة ذئب وأيل واسعة الحركة؛ واستجابة العوالق النباتية قوية في أقلية واضحة من التجارب لا في معظمها.
وفي الطبقة الثالثة أسئلة ما زالت تحتاج إلى فصل أدق بين الآليات: نصيب الذئاب من تجدد الحور في يلوستون بعد عزل المناخ والصيد والماء والمفترسات الأخرى؛ ومقدار ما يصنعه صيد المفترسات البحرية، في البحر الأحمر خصوصًا، من شلال كامل يصل إلى الطحالب، لا من حلقة رعي ثبتت وحدها؛ والظروف التي تنقلب فيها شدة التفاعل من متوسط هادئ إلى نبضة كافية لتغيير المجتمع.
هل يمكن التنبؤ بالشلال الغذائي قبل حدوثه؟
التنبؤ ممكن بدرجة جزئية، وشروطه أكثر من قائمة الأنواع. يحتاج إلى بنية الشبكة: من يأكل من، وأين المسارات البديلة. ويحتاج إلى شدة التفاعل لا إلى الحضور فقط، وإلى معرفة إن كانت هذه الشدة ثابتة أو تتغير مع حالة المجتمع، كما أظهر تفاوت موقعي ثعلب البحر. ويحتاج إلى نوع استجابة الفريسة، العدد أو السلوك أو كلاهما، وإلى القيود الآتية من أسفل، كالمغذيات والماء والحرارة. أسماء المفترس والعاشب والنبات لا تكفي. نظامان فيهما الأنواع الثلاثة نفسها قد يفترقان إذا اختلفت نبضة الافتراس، أو إذا امتصت المنافسة الأثر، أو إذا كان النبات عاجزًا عن التجدد لأسباب لا علاقة لها بالرعي.
الشلال الغذائي أداة لفهم انتقال الأثر بين مستويات الشبكة، لا قانونًا يضمن المشهد نفسه كلما عاد مفترس أو غاب. تفسيره الصحيح يتتبع الآلية، ويسمي الدليل، ويبقي اختلاف الأنظمة جزءًا من النتيجة لا عائقًا مؤقتًا أمام قصة أنظف.
ما الذي يشيع عن الشلال الغذائي ولا يصمد أمام الدليل؟
❌ الخرافة: الشلال الغذائي اسم آخر للسلسلة الغذائية، أي ترتيب الكائنات التي يأكل بعضها بعضًا.
✅ الحقيقة: السلسلة تصف مسار الغذاء. الشلال يصف أثرًا غير مباشر يعبر هذا المسار، بحيث يتغير كائن لم يقابله المفترس مباشرة. من غير هذا الامتداد لا يوجد شلال، مهما كانت السلسلة واضحة.
❌ الخرافة: المفترسات تحمي النباتات دائمًا، والشلال ظاهرة نافعة للمنظومة كلها.
✅ الحقيقة: في سلسلة بسيطة من ثلاث مستويات يكون أثر المفترس في النبات موجبًا غالبًا، لكن إضافة مستوى أعلى تقلب الاتجاه، وما يفيد نباتًا قد يضر كائنًا آخر في النظام نفسه. النفع يتحدد بالمتغير الذي نختاره، لا بطبيعة الظاهرة.
❌ الخرافة: لا يحدث الشلال إلا إذا قتل المفترس فرائسه وخفّض أعدادها.
✅ الحقيقة: القتل مسار، والخوف مسار آخر. تحليل 2005 وجد أن الترويع يغيّر ديموغرافيا الفريسة ومواردها بقوة لا تقل عن الاستهلاك في متوسط التجارب، بل تزيد عليه عند النظر إلى موارد الفريسة. وفي يلوستون، بحسب دراسة 2025، رجحت الكثافة. المساران قائمان، والغلبة للسياق.
❌ الخرافة: إذا تعافت النباتات بعد عودة المفترس، فقد ثبت أن المفترس هو السبب، وقصة ذئاب يلوستون محسومة على هذا النحو.
✅ الحقيقة: التزامن يطرح فرضية ولا يغلقها. في يلوستون تتداخل أعداد الأيائل، والسلوك، والمناخ، والصيد، والمنافسة، وهيدرولوجيا المواقع. دراسات رصينة تختلف في تقدير إسهام الذئاب، وأحدث الاختبارات الطويلة يجد كثافة الأيائل أقوى تفسيرًا لمعظم مؤشرات الخوف، مع الإبقاء على سؤال: من خفّض الكثافة؟
❌ الخرافة: إذا بدأ الشلال فإنه يبلغ قاعدة الشبكة الغذائية بالقوة نفسها في كل بيئة.
✅ الحقيقة: الأثر كثيرًا ما يخفت عند النبات، والاستجابة القوية في تجارب البحيرات كانت حال ما يزيد قليلًا على الثلث لا حال الجميع. والفرق بين الأنظمة المائية في مقارنة 2002 بلغ مقدار الفرق بين الماء واليابسة. القوة نتيجة محلية تُقاس، لا وعدًا يرافق التعريف.
التوصية العلمية من موقعنا
- أغلق المسار قبل أن تسمي الظاهرة شلالًا. الوصف السببي يحتاج إلى حلقة وسيطة مقاسة، لا إلى مفترس في أعلى الرسم ونبات في أسفله. من غير الوسيط تبقى الرواية اقترانًا زمنيًا، وقد تتحملها عوامل لا تمر بالغذاء أصلًا. هذا القيد هو الذي يفصل إدارة مبنية على آلية عن إدارة مبنية على قصة متماسكة.
- قدّر العدد والسلوك تقديرين منفصلين ثم انظر أيهما يفسر المتغير الذي يهمك. الخوف قد يسيطر في نظام مائي قصير السلسلة، والكثافة قد تسيطر حيث يطارد مفترس واسع الحركة فريسة واسعة التجوال. اختيار مؤشر خطر واحد، ثم بناء قرار حماية عليه، يكرر الخطأ الذي أظهرته المؤشرات الثمانية غير المفسِّرة في بيانات يلوستون الطويلة.
- لا تنقل معامل الشلال من بيئة نجحت فيها القصة إلى بيئة تشبهها في الأنواع. مقارنة 102 تجربة تجعل الفرق بين الشبكات المائية نفسها بحجم الفرق بين البر والماء. التشابه في وجود مفترس وعاشب ونبات ليس تشابهًا في شدة التفاعل ولا في اتجاه الإدارة الصحيح.
- في البحيرات، خطط للأقلية القوية وللأغلبية الضعيفة معًا. وسيط تجارب 1996 يدعم اتجاه الشلال، والتواء التوزيع يمنع وعدًا بأن كل مسطح سيصفو أو يخضرّ بالمقدار نفسه إذا حُركت حلقة سمكية واحدة. اقتران قرار المصايد بقياس المغذيات والعوالق معًا أقرب إلى شكل الدليل من تحريك الأسماك وحدها.
- راقب تغيّر شدة التفاعل عبر الزمن، لا متوسط الوفرة فقط. تعافي عشب البحر في موقع دون آخر لم يفسره متوسط أقوى، بل نبضة افتراس عابرة وتفاعلات تنافسية خففت الأثر في الموقع الثاني. برنامج المراقبة الذي يسجل الكثافة مرة ويفترض ثبات «قواعد اللعبة» يفوّت اللحظة التي يتقرر فيها مسار المجتمع.
- في شعاب البحر الأحمر، ابنِ الحماية على الحلقة التي قيست، واترك الحلقة التي لم تُقس مفتوحة. إقصاء العواشب ضاعف كتلة الطحالب الجافة سبع عشرة مرة في أربعة أشهر على المسطح المصري المدروس، وكانت السمكة العاشبة أكفأ من القنفذ على مستوى الفرد. هذا يسند حماية الأسماك العاشبة من الصيد بوصفها ضابطًا للطحالب. أما نسبة ما يصنعه صيد المفترسات الأعلى في هذه الأسماك فما زال يحتاج إلى قياس قبل أن يُروى بوصفه شلالًا مكتملًا.
يبقى الشلال الغذائي طريقة لتتبع أثر المفترس وهو يهبط عبر الشبكة، لا شهادة بأن المفترس يعيد التوازن كلما أُعيد إلى مكانه. أقوى ما نعرفه أننا نستطيع أحيانًا رؤية المسار حلقةً حلقة، في البركة والقفص والساحل، وأن هذا المسار يغيّر نباتات وكائنات لم يأكلها المفترس. وألزم ما ينبغي ألا يُنسى أن القوة محلية، وأن الخوف والعدد مساران لا يُغني أحدهما عن قياس الآخر، وأن عودة المفترس بلا موئل قادر على الإجابة، وبلا حلقة وسيطة ما زالت تعمل، سؤال مفتوح لا استعادة مكتملة.
يستند هذا المقال إلى منهجيات وأطر علمية معتمدة في علم البيئة وإدارة الموارد الطبيعية، من أبرزها:
- تعريف ريبل وزملائه (2016) المعتمد عالمياً لمفهوم الشلال الغذائي، المنشور في Trends in Ecology & Evolution.
- بروتوكولات خدمة المتنزهات الوطنية الأميركية (NPS) لرصد الحياة البرية وإعادة إدخال الأنواع في يلوستون.
- دلائل الاتحاد الدولي لحفظ الطبيعة (IUCN/SSC) الخاصة بإعادة توطين المفترسات الكبرى.
- منهجية التحليل التلوي القياسية (Meta-Analysis) المتبعة في تجميع نتائج التجارب البيئية المستقلة.
- إطار الإدارة القائمة على النظام البيئي (Ecosystem-Based Management) المعتمد في أبحاث مصايد الأسماك والبحيرات.
المصادر والمراجع
موقع خلية لا يتحمل أي مسؤولية قانونية أو علمية ناتجة عن استخدام المعلومات الواردة في هذا المحتوى دون الرجوع إلى المختصين المؤهلين والدراسات الأصلية.


