عملية البناء الضوئي: الآليات الجزيئية ومسارات تحويل الطاقة في النبات
كيف تحول الكائنات الحية ضوء الشمس إلى طاقة كيميائية تُغذي الحياة على الأرض؟

البناء الضوئي هو العملية الحيوية التي تقتنص بها النباتات والطحالب وبعض أنواع البكتيريا طاقة الفوتونات وتحولها إلى روابط كيميائية في جزيئات السكر. ليست المسألة شرب ماء وامتصاص ضوء على نحو ساذج، بل سلسلة تفاعلات صارمة تجري داخل عضية خلوية متخصصة، وتنتهي بإنتاج الغلوكوز وإطلاق الأكسجين. ومن دون هذه العملية لما تراكم الأكسجين في الغلاف الجوي، ولما قامت السلاسل الغذائية على قاعدة منتجة أولى تمد بقية الكائنات بالطاقة المخزونة.
أ. رنا عتيق — خبيرة علوم الأحياء
أ. لمى اليوسف — خبيرة الكيمياء التطبيقية والنظرية
- البناء الضوئي يحول طاقة الفوتونات إلى روابط كيميائية في الغلوكوز عبر مرحلتين: تفاعلات ضوئية في غشاء الثايلاكويد + دورة كالفن في الستروما.
- الأكسجين الذي نتنفسه يأتي كله من شطر جزيئات الماء (H₂O) لا من ثاني أكسيد الكربون — أثبتته تجارب النظائر عام 1941.
- كل جزيء غلوكوز يستهلك 18 ATP و12 NADPH وحداً أدنى 48 فوتوناً — ولهذا تبقى الكفاءة الحقلية بين 1% و3% رغم الحد النظري 4.6%–6%.
- روبيسكو هو البروتين الأكثر وفرة على الأرض لكنه يثبّت 3–10 جزيئات CO₂ فقط في الثانية، وهو يُخطئ فيختار O₂ بدل CO₂ في الحر مما يسبب التنفس الضوئي.
- نباتات C4 (الذرة، قصب السكر) تتفوق في الحر لأنها تعزل CO₂ مكانياً — الذرة المصرية تتجاوز 7 أطنان/هكتار مقابل متوسط عالمي 5.7.
- نخيل التمر نبات C3 يعيش في الصحراء بفضل ناقلية ثغور منخفضة وتحمّل حراري يصل 45°م صيفاً — وليس بسبب مساره الكربوني.
- مشروع RIPE 2019 رفع إنتاجية التبغ 40% بتقصير مسار التنفس الضوئي — والمحاولة جارية على القمح والأرز.
البناء الضوئي باختصار: كيف تصنع النباتات غذاءها؟
تحتاج العملية إلى ثلاثة مدخلات: ضوء الشمس، وثاني أكسيد الكربون من الهواء، والماء من التربة أو الوسط المائي. تتم التفاعلات داخل البلاستيدات الخضراء، إذ تحتوي أغشيتها الداخلية على صبغة الكلوروفيل القادرة على امتصاص أطوال موجية محددة من الضوء المرئي. الناتج الغذائي هو سكر الغلوكوز الذي يُستخدم في النمو والتنفس وتخزين الطاقة، أما الأكسجين المنطلق فيُعَدُّ بالنسبة إلى النبات ناتجاً ثانوياً لتفاعل شطر الماء، وهو في الوقت نفسه المادة التي تتنفس بها الكائنات الهوائية.
تبدأ الطاقة رحلتها كفوتون يصطدم بجزيء كلوروفيل، وتنتهي كإلكترونات عالية الطاقة وبروتونات تُختزن في جزيئي ATP وNADPH، ثم تُستثمر في تثبيت الكربون داخل دورة كالفن. وبذلك ينتقل الكون من فيزياء الضوء إلى كيمياء الغذاء في خطوات يمكن تتبعها جزيئاً بجزيء.
أبرز ما ينبغي الاحتفاظ به
- تحويل فيزيائي-كيميائي حقيقي: البناء الضوئي يحول طاقة الفوتونات إلى طاقة كيميائية مخزونة في روابط الغلوكوز، لا مجرد «امتصاص ضوء».
- مرحلتان متكاملتان: التفاعلات المعتمدة على الضوء في أغشية الثايلاكويد، ثم دورة كالفن في الستروما لتثبيت ثاني أكسيد الكربون.
- مصدر الأكسجين هو الماء: التجارب بالنظائر أثبتت أن O₂ المنطلق يأتي من شطر H₂O لا من CO₂.
- روبيسكو وفير وبطيء: إنزيم تثبيت الكربون هو البروتين الأكثر وفرة على الأرض، لكنه يثبت بضع جزيئات فقط من CO₂ في الثانية الواحدة.
- مسارات C4 وCAM: توجد لدى بعض النباتات ترتيبات مكانية أو زمنية لتثبيت الكربون تقلل التنفس الضوئي وتوفر الماء في البيئات الحارة والجافة.
ما هي عملية البناء الضوئي وكيف تُبقي الحياة حية؟
التعريف الفسيولوجي والأهمية البيئية
البناء الضوئي، ويُسمى أيضاً التركيب الضوئي (Photosynthesis)، هو نمط التغذية الذاتية الضوئية (Photoautotrophy): قدرة الكائن على بناء مواده العضوية من مواد لا عضوية باستخدام الضوء مصدراً للطاقة. النباتات البرية والطحالب والبكتيريا الزرقاء هي المنتِجات الأولية التي تضع الكربون الجوي في صورة سكر، ومنها تبدأ حركة الطاقة في الغلاف الحيوي.
الأثر البيئي مزدوج. فمن جهة تُوازن العملية الغازات الجوية بسحب CO₂ وإطلاق O₂، ومن جهة ثانية تمد الشبكات الغذائية بالأساس الكربوني. التقديرات الفيزيائية الحيوية تشير إلى أن البناء الضوئي على مستوى الكوكب يخزن في المتوسط نحو 100 تيراواط من الطاقة الكيميائية، أي ما يعادل نحو 0.1% من الطاقة الشمسية الساقطة على الأرض إذا قيس المتوسط السنوي الشامل، لا كفاءة الورقة الواحدة في لحظة مثالية. الرقم يبدو متواضعاً، لكنه يكفي لإعالة الغلاف الحيوي بأكمله.
المعادلة الكيميائية الشاملة وتفسير مدخلاتها ومخرجاتها
تُختزل العملية في المعادلة الصافية الموزونة الآتية:
6 CO2 + 6 H2O + light → C6H12O6 + 6 O2
ستة جزيئات من ثاني أكسيد الكربون تدخل من الثغور أو من الماء المحيط، وستة جزيئات ماء تُستهلك صافياً، والضوء يزوّد النظام بالطاقة الحرة اللازمة لجعل التفاعل غير التلقائي ممكناً. الناتج عضوي هو جزيء غلوكوز واحد، والناتج اللاعضوي ستة جزيئات أكسجين.
الصيغة أدق كيميائياً إذا كُتبت باثني عشر جزيء ماء في الطرف المتفاعل، لأن شطر الماء في التفاعلات الضوئية يستهلك 12 H₂O، في حين تتحرر 6 H₂O لاحقاً في أثناء تكوين السكر، فيبقى الصافي ستة. هذه الملحوظة ليست تجميلاً حسابياً؛ فهي المفتاح الذي يجيب عن سؤال شائع: من أين يأتي الأكسجين المنطلق تحديداً؟ يأتي كله من الماء، لا من ثاني أكسيد الكربون.
في عام 1941 استخدم صموئيل روبن ومارتن كامن وميرل راندال وجيمس هايد نظير الأكسجين الثقيل ¹⁸O وزرعوا طحالب Chlorella في وسطين متعاكسين: ماء موسوم وثاني أكسيد كربون عادي، ثم العكس. تطابق تركيب الأكسجين المنطلق مع تركيب الماء لا مع تركيب الكربونات. نُشرت النتيجة في Journal of the American Chemical Society، وأغلقت باب نظرية قديمة كانت تنسب الأكسجين إلى CO₂.
كل مدخل يؤدي وظيفة تفاعلية مختلفة. الضوء ليس «حرارة مشعة» هنا، بل كمات طاقة تُثير إلكترونات الكلوروفيل. الماء مانح إلكترونات يعوّض ما فقده النظام الضوئي الثاني، ومصدر بروتونات تُضخ إلى تجويف الثايلاكويد. أما CO₂ فهو مستقبل الكربون الذي تُبنى منه الهيكل الكربوني للسكر. الغلوكوز نفسه قد لا يبقى غلوكوزاً حراً طويلاً؛ يتحول بسرعة إلى سكروز للنقل أو نشا للتخزين أو سليلوز لـجدار الخلية.
المصنع الخلوي: أين وكيف تحدث عملية البناء الضوئي؟
تشريح البلاستيدة الخضراء
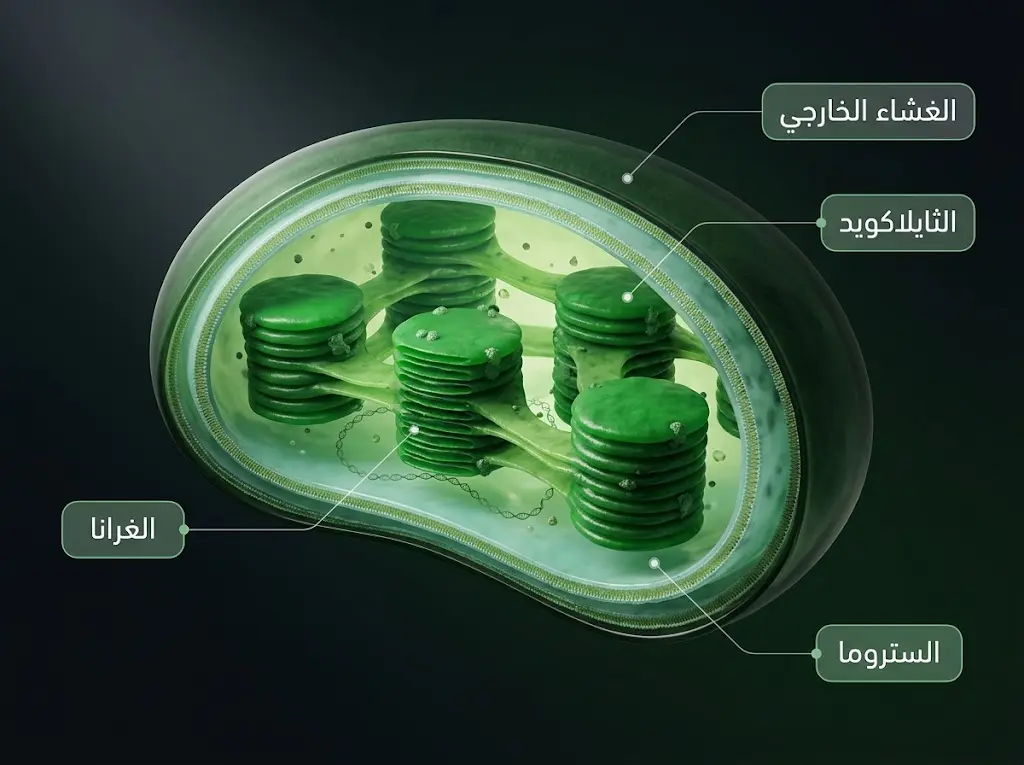
البلاستيدة الخضراء (Chloroplast) عضية بيضاوية يحدها غشاءان: خارجي نسبياً منفذ عبر بورينات، وداخلي انتقائي يضبط عبور الأيونات والنواتج. بينهما فراغ بينغشائي ضيق. داخل الغشاء الداخلي تمتد شبكة من أكياس غشائية مسطحة تُسمى الثايلاكويدات (Thylakoids). تتكدس مجموعات منها فتكوّن الغرانا (Grana)، وهي أقراص متراصة تزيد مساحة الغشاء الحامل للأنظمة الضوئية. الحشوة المحيطة تُسمى الستروما (Stroma)، وهي محلول إنزيمي يحتوي DNA حلقياً وريبوسومات من النمط البكتيري 70S، إضافة إلى إنزيمات دورة كالفن.
هذا التقسيم المكاني ليس تجميلاً تشريحياً. التفاعلات المعتمدة على الضوء تحتاج غشاءً متصلاً لعزل البروتونات، في حين تحتاج دورة كالفن وسطاً مائياً غنياً بالإنزيمات وATP وNADPH. الغشاء والستروما إذن مصنعان متجاوران يتبادلان النواتج عبر ناقلات متخصصة.
اقرأ أيضاً:
صبغات البناء الضوئي وأطياف الامتصاص
الكلوروفيل أ (Chlorophyll a) هو الصبغة الرئيسة في مراكز التفاعل. جزيؤه بورفيريّ يحتوي مغنيسيوم في المركز وذيلاً فيتوليّاً يثبته في الغشاء. يمتص بقوة في الأزرق (نحو 430 نانومتراً) والأحمر (نحو 662 نانومتراً)، ويعكس الأخضر، ولهذا تبدو الأوراق خضراء. الكلوروفيل ب (Chlorophyll b) صبغة مساعدة يمتص في نطاقات مزاحمة قليلاً (نحو 453 و642 نانومتراً) وينقل الطاقة إلى الكلوروفيل أ.
الكاروتينويدات تمتص في الأزرق-الأخضر، وتؤدي دورين: توسيع طيف الاقتناص، وحماية النسيج من فائض الطاقة عبر دورات الزانثوفيل التي تبدد الطاقة الزائدة حرارةً قبل أن تولّد أنواعاً أكسجينية تفاعلية. في الطحالب الحمراء والبكتيريا الزرقاء تؤدي الفيكوبيلينات وظيفة مماثلة في نطاقات لا يغطيها الكلوروفيل بكفاءة.
ينبغي التمييز بين طيف الامتصاص وطيف الفاعلية. طيف الامتصاص يصف الأطوال الموجية التي تبتلعها الصبغات. طيف الفاعلية يصف الأطوال التي تُنتج فعلاً أكسجيناً أو تثبيتاً للكربون. التجربتان ليستا نسخة واحدة؛ فالضوء الممتص قد يُبدَّد حرارة أو فلورة إذا لم يصل إلى مركز التفاعل. في ثمانينيات القرن التاسع عشر بيّن ثيودور إنغلمان، بتوزيع بكتيريا هوائية حول خيط طحلبي مضاء بطيف منشور، أن أكبر تجمع للبكتيريا يقع عند الأزرق والأحمر، لا عند الأخضر. لاحقاً كشف روبرت إيمرسون «الهبوط الأحمر»: كفاءة الكم تنخفض بحدة فوق نحو 680 نانومتراً إذا استُخدم ضوء أحمر بعيد وحده، ثم ترتفع إذا أُضيف ضوء أقصر موجة. كانت تلك إشارة مبكرة إلى وجود نظامين ضوئيين يعملان بترادف.
الأرقام الواردة في الرسم مستقاة حرفياً من المقالة. ذروة الكاروتينويدات لم يُحدَّد لها رقم دقيق في المقالة فأُشير إلى نطاقها فقط. منحنيات الامتصاص تمثيلية تبسيطية لإيضاح المفهوم وليست قياسات طيفية دقيقة. المصدر: المعلومات الواردة في قسم «صبغات البناء الضوئي وأطياف الامتصاص».
رقم يستحق الانتباه: الكفاءة الحقلية لتحويل الإشعاع الشمسي الكلي إلى كتلة حيوية في المحاصيل لا تتجاوز في العادة 1% إلى 3%، في حين يبلغ الحد النظري نحو 4.6% لنباتات C3 ونحو 6% لنباتات C4 عند 30°م وفق تحليل تشو ولونغ وأورت (2008). الفجوة بين النظرية والحقل هي المساحة التي يعمل فيها تحسين المحاصيل اليوم.
المصادر: Zhu, Long & Ort (2008) للكفاءة النظرية | FAO FAOSTAT (2022) لمردود القمح | الكفاءة الحقلية: متوسط التقديرات الواردة في المقالة. كلا المحصولين نبات C3 — الفارق يعكس أثر الماء لا المسار الكربوني.
اقرأ أيضاً:
- الإنتاج النباتي: المفاهيم، التحديات، ومستقبل الزراعة
- الزراعة الذكية: التكنولوجيا والبيانات لتحسين المحاصيل
المرحلة الأولى: التفاعلات المعتمدة على الضوء
هنا يتحول ضوء الشمس الفيزيائي إلى طاقة كيميائية داخل الخلية. المسرح هو غشاء الثايلاكويد، والممثلون نظامان ضوئيان مرتبان وفق مخطط يُعرف بمخطط Z.
اقتناص الطاقة في النظامين الضوئيين
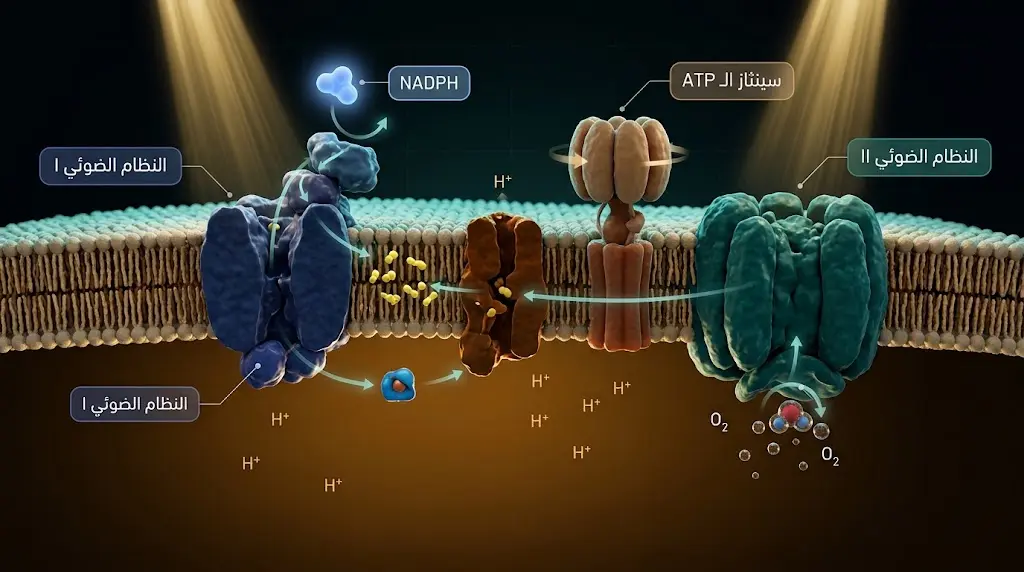
النظام الضوئي الثاني (PSII) يحتوي مركز تفاعل يُسمى P680 لأنه يمتص بذروة قرب 680 نانومتراً. النظام الضوئي الأول (PSI) مركزه P700. كل نظام مركب بروتيني-صبغي ضخم: هوائيات من مئات جزيئات الكلوروفيل تنقل طاقة الإثارة بالرنين إلى زوج خاص من الكلوروفيل أ في المركز. عند وصول الفوتون يُقذف إلكترون إلى مستقبل أولي، فيصبح المركز مؤكسَداً وموجباً، ويبدأ سباق تعويض الإلكترون.
الإلكترون لا يقفز مباشرة من الماء إلى السكر. يخرج من P680 إلى الفيوفيتين ثم إلى الكينونات QA وQB، ويعبر معقد السيتوكروم b₆f، ثم البلاستوسيانين، ليصل إلى P700 الذي أُثير بدوره بفوتون ثانٍ. من PSI ينتقل الإلكترون عبر الفيرودوكسين إلى إنزيم مختزِل NADP⁺، فيتكون NADPH في الستروما. مساران إذن متتاليان، وكل إلكترون يحتاج فوتونين؛ أربعة إلكترونات لتكوين جزيء O₂ واحد تعني ثمانية فوتونات حداً أدنى.
الانشلاق الضوئي للماء وسلسلة نقل الإلكترون
P680⁺ مؤكسِد بالغ القوة، وهو القادر على انتزاع إلكترونات من الماء. يحدث ذلك عبر معقد توليد الأكسجين (Oxygen-Evolving Complex)، وعنه تتشكل الصورة الجزيئية الأعمق للعملية.
لماذا لا ينشق الماء بفوتون واحد؟
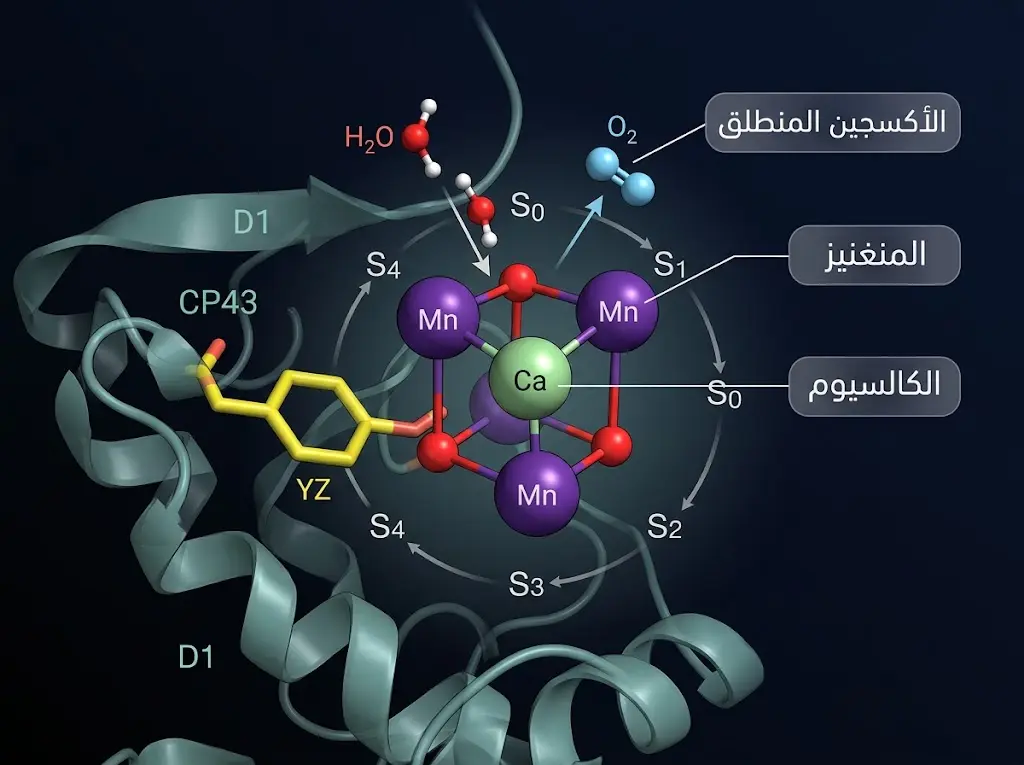
يركز التفسير التمهيدي عادةً على أن الضوء يشطر الماء فيطلق أكسجيناً. هذا صحيح على مستوى الناتج الصافي، لكنه لا يغطي قيد الكيمياء الضوئية: أكسدة جزيئين من الماء إلى O₂ تفاعل يفقد أربعة إلكترونات، في حين أن مركز التفاعل ينتزع إلكتروناً واحداً لكل فوتون. الحل داخل النظام الضوئي الثاني هو مركب المنغنيز-الكالسيوم Mn₄CaO₅ المرتبط ببروتيني D1 وCP43، ويعمل وفق دورة كوك (Kok cycle) ذات الحالات S₀ إلى S₄. كل وميض يدفع المركب خطوةً واحدة عبر البقايا التيروسينية YZ؛ وبعد أربعة فوتونات متتابعة تتكون رابطة O–O في الحالة العابرة S₄، وينطلق جزيء الأكسجين، ويعود المركب إلى S₀ مع ارتباط ماء جديد. نمط تحرّر البروتونات التقريبي 1:0:1:2 يحول دون تراكم شحنة مفرطة في الموقع النشط. وتكمن أهمية هذا المستوى في تفسير لمَ كان الأكسجين ناتجاً ثانوياً لتراكم مكافئات مؤكسِدة لا «فكاً» لـCO₂، ولمَ تظل محاكاة الورقة الاصطناعية صعبة رغم بساطة المعادلة الصافية.
2 H2O → O2 + 4 H+ + 4 e−
حركة الإلكترونات عبر السلسلة ليست مجرد تيار. عند معقد السيتوكروم b₆f تُضخ بروتونات إضافية إلى تجويف الثايلاكويد (آلية تشبه دورة Q في المتقدرات). النتيجة مضاعفة: تيار إلكتروني يختزل NADP⁺، وتدرج بروتوني يدير تخليق ATP.
الأسموزية الكيميائية وتخليق ATP وNADPH
التدرج البروتوني عبر غشاء الثايلاكويد شكل من الأسموزية الكيميائية (Chemiosmosis) وصفه بيتر ميتشل في ستينيات القرن العشرين. التجويف يصير أكثر حموضة من الستروما. إنزيم سينثاز الـATP (ATP Synthase)، بتركيبته الدوّارة CF₀-CF₁، يسمح للبروتونات بالعودة إلى الستروما، وتُستخدم الطاقة الحرة لهذا الجريان في ربط فوسفات غير عضوي بـADP. في الوقت نفسه يُختزل NADP⁺ إلى NADPH على الوجه السترومي.
النقل غير الحلقي ينتج NADPH وATP معاً. غير أن دورة كالفن تستهلك ATP أكثر مما يوفّره المسار غير الحلقي بنسبة دقيقة؛ لذلك يعمل نقل حلقي حول PSI عند الحاجة، فيُنتج ATP إضافياً دون NADPH ودون أكسجين. النبات يضبط النسبة بحسب الطلب الأيضي وشدة الضوء.
لإنتاج جزيء غلوكوز واحد تحتاج دورة كالفن إلى 12 NADPH و18 ATP. وبما أن كل NADPH يحتاج إلكترونين، وكل إلكترون يعبر النظامين، فالحد الأدنى الكمي يقترب من 48 فوتوناً لكل غلوكوز، قبل احتساب الضياع بالفلورة والتنفس الضوئي والتنفس الميتوكوندري. من هنا يتضح لماذا تبقى الكفاءة الحقلية في خانة الآحاد المئوية.
اقرأ أيضاً:
- الفسفرة (Phosphorylation): الآلية، الأنواع، والدور في الطاقة
- عملية الأيض (Metabolism): العمليات الكيميائية للحياة
التفاعلات الضوئية (غشاء الثايلاكويد)
2 NADPH + 3 ATP
12 NADPH
تنتقل إلى
دورة كالفن (الستروما)
6 دورات تثبيت كربون
* مخطط تبسيطي يعتمد على المعلومات الواردة في المقالة — لإنتاج غلوكوز واحد: 8 فوتونات حداً أدنى للمرحلة الأولى × 6 = 48 فوتوناً، و18 ATP و12 NADPH للمرحلة الثانية.
المرحلة الثانية: دورة كالفن وتثبيت الكربون
التفاعلات التي تلي الضوء لا تحدث «في الظلام» بالضرورة، ولا تستغني عن نواتج الضوء. الاسم الأدق هو تفاعلات تثبيت الكربون أو دورة كالفن-بنسون-باشام، نسبة إلى ميلفين كالفن وأندرو بنسون وجيمس باشام الذين تتبعوا المسار في أربعينيات القرن العشرين وخمسينياته بكربون مشع ¹⁴C.
تثبيت الكربون ودور إنزيم روبيسكو
تبدأ الدورة باتحاد CO₂ مع جزيء ريبولوز-1،5-ثنائي الفوسفات (RuBP)، وهو سكر خماسي مفسفر. الإنزيم الذي يُحفّز الخطوة هو روبيسكو (RuBisCO: ribulose-1,5-bisphosphate carboxylase/oxygenase). الوسيط السداسي الكربون غير مستقر، فينشطر فوراً إلى جزيئين من 3-فوسفوغليسيرات (3-PGA).
روبيسكو أكثر بروتينات الأرض وفرة؛ يشغل نحو 30% إلى 50% من البروتين الذائب في أوراق نباتات C3. ومع ذلك فهو بطيء على نحو لافت: كل جزيء إنزيم يثبت نحو 3 إلى 10 جزيئات CO₂ في الثانية، في حين تُنجز إنزيمات أخرى آلاف الدورات في الثانية. البطء يُعوَّض بالكمية الهائلة. والأهم أن الموقع النشط لا يميّز تمييزاً قاطعاً بين CO₂ وO₂؛ فالجزيئان خطّيان وصغيران، والإنزيم يعمل في جو أصبح فيه الأكسجين وفيراً بعد أن كان شحيحاً في عصور أقدم. لذلك يحمل روبيسكو نشاطاً أكسجينيّاً إلى جانب النشاط الكربوكسيلي. عند حرارة مرتفعة وتركيز داخلي منخفض من CO₂ ترتفع نسبة الأكسجة، فيبدأ التنفس الضوئي.
هذا هو الجواب عن سؤال: لماذا يُعَدُّ روبيسكو أوسع الإنزيمات انتشاراً وأبطأها كفاءة؟ لأنه يحفّز تفاعلاً صعب التحريك كيميائياً، ولأن عليه أن يعمل في هواء يحتوي أكسجيناً أكثر من ثاني أكسيد الكربون بنحو 500 ضعف حجماً، ولأن تحسين السرعة كثيراً ما يأتي على حساب التخصصية بين الغازين. الكائن يملأ الورقة بالإنزيم فيعوّض البطء بالكمية.
| وجه المقارنة | نشاط الكربوكسيلاز (CO₂) | نشاط الأكسجيناز (O₂) |
|---|---|---|
| الركيزة المرتبطة | ثاني أكسيد الكربون CO₂ | الأكسجين O₂ |
| الناتج الأولي | جزيئان من 3-PGA (ثلاثي الكربون) | جزيء 3-PGA + جزيء 2-فوسفوغليكولات |
| المسار الناتج | دورة كالفن ← سكر | التنفس الضوئي ← CO₂ بلا سكر |
| تأثيره على الإنتاجية | يرفع الكتلة الحيوية | يخفّض الإنتاجية 20%–50% في الحر |
| العوامل التي تزيده | ارتفاع CO₂، انخفاض حرارة، رطوبة عالية | ارتفاع حرارة، انخفاض CO₂، وفرة O₂ |
| تفضيله في نباتات C4 | يُهيمن بسبب تركيز CO₂ عند روبيسكو | مكبوت شبه كلياً في خلايا الغلاف الحزمي |
| استهلاك الطاقة في المسار | 18 ATP + 12 NADPH لكل غلوكوز | ATP وNADPH إضافيان يُستهلكان دون إنتاج سكر |
| هدف هندسة المحاصيل الحديثة | تعظيمه عبر رفع CO₂ أو مسارات بديلة | تقليله عبر اختصار مسار التنفس الضوئي |
الاختزال وتشكيل السكريات الثلاثية
3-PGA جزيء منخفض الطاقة نسبياً. يُفسفَر أولاً بـATP فيصير 1،3-ثنائي فوسفوغليسيرات، ثم يُختزل بـNADPH إلى غليسيرألدهيد-3-فوسفات (G3P). G3P هو السكر الثلاثي الذي يمكن أن يخرج من الدورة نحو تصنيع الغلوكوز والسكروز والنشا، أو يبقى داخلها لإعادة بناء RuBP.
لكل ثلاثة جزيئات CO₂ تدخل الدورة تتكوّن ستة G3P، يُسحب واحد منها صافياً نحو السكريات، وتُستخدم الخمسة الباقية في تجديد المستقبل. لذلك لا يظهر الغلوكوز السداسي إلا بعد دورتين صافيتين من هذا الميزان، أي بعد تثبيت ستة CO₂.
إعادة إنتاج RuBP
تجديد RuBP مسار إعادة ترتيب كربوني يمر بسكر رباعي وخماسي وسداسي وسباعي، وتستهلك خطوته الأخيرة ATP. من دون هذا التجديد تتوقف الدورة بعد دورة واحدة، مهما توافر الضوء وCO₂. الاستمرارية هنا كيميائية: كل كربون يدخل يجب أن يُعاد ترتيب هيكله حتى يبقى المستقبل جاهزاً.
جميع الأرقام الواردة في المخطط مستقاة حرفياً من المقالة. الدورة تحتاج 6 دورات كاملة لإنتاج جزيء غلوكوز واحد (تثبيت 6 CO₂). المصدر: قسم «دورة كالفن وتثبيت الكربون» في المقالة.
الميزان الصافي لجزيء غلوكوز واحد:
6 CO2 + 18 ATP + 12 NADPH → C6H12O6 + 18 ADP + 18 Pi + 12 NADP+
الضوء لا يظهر في هذه المعادلة، لكنه الشرط الخفي لوجود ATP وNADPH.
اقرأ أيضاً:
- ثاني أكسيد الكربون الجوي ودورة الكربون: تأثير الإنسان والتوازن البيئي
- الدورات البيوجيوكيميائية: نقل العناصر الأساسية في الأنظمة البيئية
مسارات تثبيت الكربون: C3 وC4 وCAM
ليست كل النباتات تُسلّم CO₂ مباشرة إلى روبيسكو في الخلايا المتوسطية. الحرارة العالية والجفاف يرفعان كلفة التنفس الضوئي، فظهرت في أنواع مختلفة ترتيبات تشريحية وزمنية ترفع تركيز CO₂ عند الموقع النشط أو تفصل فتح الثغور عن ساعات الحر.
المسار التقليدي ونباتات C3 ومشكلة التنفس الضوئي
في القمح والأرز ونخيل التمر ومعظم الأشجار، أول مركب مستقر بعد التثبيت ثلاثي الكربون (3-PGA)، ومنه جاء الاسم C3. عندما يرتبط روبيسكو بالأكسجين بدل CO₂ يتكوّن 3-PGA مع 2-فوسفوغليكولات، وهو مركب ينبغي التخلص منه. مسار التنفس الضوئي (Photorespiration) يمر بالبلاستيدة والبيروكسيسوم والمتقدرة، ويُطلق CO₂ بعد استهلاك ATP وNADPH، من دون إنتاج سكر صافٍ. في الحر قد يخفض هذا المسار إنتاجية محاصيل C3 بنسبة 20% إلى 50% بحسب درجة الحرارة والرطوبة وتركيز CO₂.
ليس التنفس الضوئي خللاً مطلقاً في كل الظروف؛ فهو يصرف فائض الطاقة في الضوء الشديد ويشارك في أيض النتروجين. لكنه، من منظور المحصول الغذائي، ضريبة باهظة.
مسار هاتش-سلاك ونباتات C4
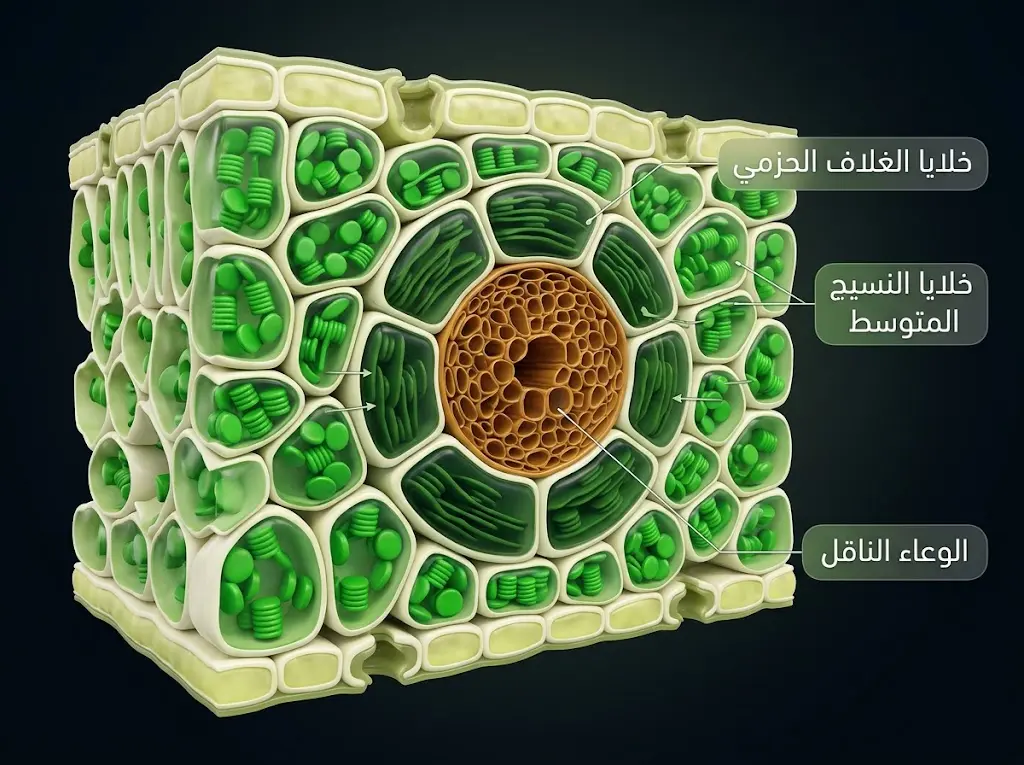
في الذرة وقصب السكر والذرة الرفيعة يحدث فصل مكاني. في خلايا النسيج المتوسط يثبّت إنزيم فوسفوينول بيروفات كربوكسيلاز (PEPC) البيكربونات في مركب رباعي الكربون (أوكسالوأسيتات ثم مالات أو أسبارتات). ينتقل المركب إلى خلايا الغلاف الحزمي المحيطة بالعروق، وهناك يُنزع الكربوكسيل وينطلق CO₂ بتركيز مرتفع حول روبيسكو. يُسمى هذا التشريح تشريح كرانز (Kranz Anatomy): حلقة متراصة من خلايا الغلاف الحزمي ذات بلاستيدات متخصصة، تحيط بها خلايا متوسطية. النتيجة تثبيط شبه كامل للتنفس الضوئي، وكفاءة أعلى في استعمال الماء والنتروجين في البيئات الحارة المشمسة. الكلفة: ATP إضافي لضخ الكربون بين النسيجين، لذلك لا تتفوق نباتات C4 في المناخات الباردة الرطبة.
أيض حمض الكراسولاسين ونباتات CAM
الصبار والأناناس والأغاف تفصل التثبيت زمنياً لا مكانياً. ليلاً تُفتح الثغور، ويُثبَّت CO₂ بـPEPC، ويُخزَّن المالات في الفجوة العصارية. نهاراً تُغلق الثغور حفظاً للماء، ويُفكك المالات ليغذي دورة كالفن تحت ضوء الشمس. النبات بذلك يبني السكر في الحر دون أن يفتح مسامه في أشد ساعات التبخر. النمو أبطأ عادةً، لكن البقاء في الصحراء يصبح ممكناً.
ما يُطرح من نماذج لتفسير اختلاف هذه المسارات بين الأنواع يبقى قراءة عقلية لآيات فسيولوجية بالغة الإحكام، ونؤمن أن الله البارئ المصور هو من قدّر لكل نبات ما يُصلحه في بيئته، من قمح السهول إلى صبار الرمال.
| المعيار | C3 نباتات | C4 نباتات | CAM نباتات |
|---|---|---|---|
| أول إنزيم تثبيت | روبيسكو | PEPC ثم روبيسكو | PEPC ليلاً ثم روبيسكو نهاراً |
| أول مركب مستقر | 3-PGA (ثلاثي الكربون) | أوكسالوأسيتات / مالات (رباعي الكربون) | مالات يُخزَّن في الفجوة |
| آلية رفع CO₂ عند روبيسكو | لا فصل خاص | فصل مكاني (تشريح كرانز) | فصل زمني (ليل / نهار) |
| التنفس الضوئي في الحر | مرتفع | منخفض جداً | منخفض |
| كفاءة استعمال الماء | أدنى نسبياً | عالية | الأعلى عادةً |
| أمثلة | قمح، أرز، نخيل التمر | ذرة، قصب السكر، الذرة الرفيعة | صبار، أناناس، أغاف |
اقرأ أيضاً:
- النباتات الصحراوية (Xerophytes): الدليل العلمي الشامل لآليات التكيف والبقاء في أقسى البيئات
- تقليل إجهاد النبات (Plant Stress Reduction): التقنيات، الآليات، والتطبيقات
العوامل الحاكمة لمعدل البناء الضوئي
المعدل لا تحدده وفرة مورد واحد، بل أضيق عامل في اللحظة، وفق ما صاغه ف. ف. بلاكمان عام 1905 في قانون العوامل المحددة: إذا ارتفعت شدة الضوء وظل CO₂ شحيحاً، فلن يزيد التثبيت. وإذا توافر الاثنان وارتفعت الحرارة فوق نطاق عمل الإنزيمات، انهار المعدل رغم وفرة الضوء.
شدة الضوء والطول الموجي
عند إضاءة خافتة يزيد معدل البناء الضوئي تقريباً على نحو خطي مع شدة الضوء. نقطة التعويض الضوئي هي الشدة التي يتساوى عندها البناء الضوئي مع تنفس النبات؛ تحتها يخسر الكربون. عند شدات أعلى تبلغ الورقة نقطة التشبع الضوئي، إذ تصير دورة كالفن أو توصيل CO₂ هي المحدِّد. الأطوال الموجية ليست متكافئة: الأحمر والأزرق أكثر فاعلية، والأخضر أقل امتصاصاً وإن لم يكن عديم النفع تماماً داخل الورقة السميكة التي تشتت الضوء. الضوء المفرط لا يزيد السكر بل يفعّل آليات الحماية، وقد يُتلف PSII إذا طال الإجهاد (التثبيط الضوئي).
تركيز ثاني أكسيد الكربون ودرجة الحرارة
روبيسكو يعمل أسرع كلما ارتفع CO₂ حول الموقع النشط، إلى حد إشباع. رفع CO₂ الجوي يقلل أيضاً من الأكسجة التنافسية. أما الحرارة فسلاح ذو حدين: تسرّع التفاعلات الإنزيمية ضمن نطاق، ثم ترفع نسبة نشاط الأكسجينيز في روبيسكو، وتزيد إغلاق الثغور إذا ترافق الحر مع جفاف، وقد تُفسد أغشية الثايلاكويد إذا تجاوزت حد الاستقرار. لذلك قد يتوقف البناء الضوئي الصافي عند ارتفاع شديد في الحرارة رغم وفرة الضوء؛ ليست المشكلة نقص فوتونات، بل اختلال توازن الكربكسلة/الأكسجة وإغلاق مسار الغازات وخطر تلف البروتينات.
الماء، الثغور، وقانون بلاكمان
الماء مادة تفاعل ووسط ناقل ومحدد لفتح الثغور. إذا أغلق النبات الثغور حفظاً للماء، انقطع دخول CO₂ وتراكم الأكسجين الداخلي، فانخفض التثبيت وارتفع التنفس الضوئي. العامل الأقل توافراً هو الذي يقرر كفاءة العملية برمّتها، مهما زاد غيره.
اقرأ أيضاً:
نخيل التمر حين يعمل البناء الضوئي في حر الجزيرة
نخيل التمر (Phoenix dactylifera) نبات C3 يُزرع في قلب المناخ الجاف للجزيرة العربية ووادي النيل والمغرب العربي. ليس من نباتات CAM، ومع ذلك يعيش في حر صيفي يتجاوز ما تحتمله محاصيل C3 المعتدلة. في دراسة لكروز وزملائه (2019) على شتلات أُقلمت لمناخي شتاء وصيف يشبهان أحساء السعودية، تراوح درجة الحرارة المثلى لصافي البناء الضوئي بين 20 و33°م شتاءً، و28 و45°م صيفاً. حتى مع الري الكامل بقيت ناقلية الثغور منخفضة مقارنة بأنواع أخرى تُعَدُّ ناقليتها تلك علامة إجهاد مائي. الحر والجفاف خفّضا المعدل إلى 30%–80% من الشاهد، لكن السبب لم يكن نقص CO₂ الداخلي وحده؛ النبات يحافظ على ماءه أولاً ويعيد ضبط جهازه الضوئي.
هذا المثال يوضح أن المسار الكربوني (C3 مقابل C4) ليس القصة كاملة. التشريح الورقي الصّلد، وانخفاض الناقلية حتى في الري، وإزاحة درجة الحرارة المثلى مع الفصل، منظومة فسيولوجية تسمح لنبات ثلاثي الكربون أن يثمر في الصحراء.
بحسب بيانات منظمة الأغذية والزراعة لعام 2021، بلغ متوسط إنتاجية الحبوب في الدول العربية 19٬487 هكتوغراماً للهكتار، أي نحو 1.95 طن/هكتار، وهو أقل من المتوسط العالمي بنسبة 53%. بإعادة الحساب من النسبة المنشورة ينتج أن المتوسط العالمي المناظر يقارب 4.15 طن/هكتار، أي أن إنتاجية الحبوب العربية كانت نحو 47% من المستوى العالمي في تلك السنة. الرقم لا يقيس كفاءة الورقة الجزيئية مباشرة، لكنه يكشف أثر الماء والحرارة وإدارة المحصول على ناتج البناء الضوئي الحقلي.
وتظهر المقارنة داخل الإقليم التباين نفسه. في بيانات FAOSTAT لسنة 2022 بلغ مردود القمح 6٬782 كغ/هكتار في مصر مقابل 1٬111 كغ/هكتار في المغرب؛ أي أن المردود المصري كان نحو 6.1 أمثال المغربي في تلك السنة. القمح في البلدين نبات C3، والفارق الأكبر هنا ري النيل المنتظم مقابل الاعتماد على أمطار متقلبة، لا اختلاف المسار الكربوني. في المقابل، يتجاوز مردود الذرة المصرية، وهي محصول C4، 7 أطنان للهكتار في السنوات المعتادة، ويعلو على المتوسط العالمي للذرة البالغ نحو 5.7 طن/هكتار في 2022. أما نخيل التمر في السعودية فقد أوردت دراسة علمية لعام 2024 إنتاجاً وطنياً قدره 1.61 مليون طن من مساحة تفوق 156 ألف هكتار، أي ما يعادل نحو 10.3 طن/هكتار وفق القسمة المباشرة لهذين الرقمين. الاستنتاج المشتق من هذه الأرقام أن المسار C4 يمنح أفضلية واضحة حين يتوافر الري والحر، لكن شح الماء في الإقليم العربي يظل في حالات كثيرة أضيق عامل بلاكماني، حتى قبل أن يُحسم سباق C3 وC4.
يظهر من الحساب أن مصر، بوصفها نظام ري نهري، تقترب مردوداتها من حدود فسيولوجية أعلى، في حين يبقى متوسط الإقليم أسير الندرة المائية. الفارق هنا لا يعني بالضرورة اختلافاً في «جودة» النبات الوراثية بقدر ما يعني اختلاف العامل المحدد.
اقرأ أيضاً:
التاريخ العلمي والتغير الكبير في غلاف الأرض
حدث الأكسدة العظيم
لم يكن الغلاف الجوي القديم غنياً بالأكسجين الحر. تشير القراءات الجيوكيميائية إلى أن تراكم O₂ على نحو دائم بدأ قبل نحو 2.4 إلى 2.1 مليار سنة، في ما يُعرف بحدث الأكسدة العظيم (Great Oxidation Event). البكتيريا الزرقاء (Cyanobacteria) كانت الكائنات القادرة على البناء الضوئي الأكسجيني: شطر الماء وإطلاق O₂. سبقت الأدلة على نشاطها الحدث نفسه بمئات الملايين من السنين في بعض التقديرات؛ فقد كان الأكسجين يُستهلك أولاً في أكسدة الحديد المذاب والكبريتيد قبل أن يفيض إلى الهواء. حين فاض، تغيّرت كيمياء المحيطات والصخور، وتشكلت طبقات الحديد الشريطي، وانفتحت لاحقاً إمكانية التنفس الهوائي الذي يحرر من الغلوكوز طاقة أكبر كثيراً مما يحرره التخمر.
إن ترتيب الشواهد الصخرية والنظائرية في سيناريو لتغير الغلاف يبقى اجتهاداً علمياً قابلاً للمراجعة، والحقيقة التي ندين بها أن الله عز وجل هو من أودع في تلك المخلوقات الدقيقة قدرة صناعة الأكسجين وقدّر تحول الهواء في أجله بحكمة بالغة.
اقرأ أيضاً:
أصل البلاستيدة داخل الخلية
البلاستيدة الخضراء ليست «جزءاً عادياً» من الخلية النباتية. لها غشاءان، وDNA حلقي، وريبوسومات 70S، وتتكاثر بالانشطار. تطرح نظرية التكافل الداخلي (Endosymbiotic Theory)، التي أعاد لين مارغوليس صياغتها في ستينيات القرن العشرين بعد مقترحات أقدم لكونستانتين ميريشكوفسكي، تفسيراً لهذه السمات بأن البلاستيدات نشأت من بكتيريا زرقاء دخلت خلية حقيقية النواة قديمة وبقيت داخلها. المتقدرات تُفسَّر بأصل بكتيري مختلف. الدليل الجزيئي المعاصر يدعم الشبه بين جينوم البلاستيدة وجينوم البكتيريا الزرقاء، مع انتقال معظم الجينات عبر الزمن إلى نواة الخلية المضيفة.
تظل هذه المقاربات قراءة علمية نسبية لتاريخ العضية داخل الخلية، والآية الباقية أن الله جل جلاله هو من أبدع هذا التداخل الدقيق بين أغشية ونظم جينية حتى صارت الورقة مصنعاً واحداً متقناً.
من جهة تاريخ الفهم البشري، لم تُحل مسألة مصدر الأكسجين إلا بالنظائر في 1941، ولم تُرسم دورة الكربون إلا بالكربون المشع في مختبر كالفن، ولم يُرَ تركيب Mn₄CaO₅ بدقة ذرية إلا ببلورات الأشعة السينية في العقود الأخيرة، وصولاً إلى دراسات ليزر الإلكترونات الحرة التي تلتقط حالات S المتتابعة.
| الحقبة | الاكتشاف أو الإنجاز | العالم / الفريق | الأداة أو المنهج | الأثر العلمي |
|---|---|---|---|---|
| 1880 | إثبات أن الأزرق والأحمر هما الأكثر فاعلية في البناء الضوئي | ثيودور إنغلمان | توزيع بكتيريا هوائية على طيف ضوء منشور | أرسى مفهوم طيف الفاعلية وميّزه عن طيف الامتصاص |
| 1941 | إثبات أن O₂ المنطلق يأتي من الماء لا من CO₂ | روبن، كامن، راندال، هايد | نظير الأكسجين الثقيل ¹⁸O في طحالب Chlorella | أغلق باب نظرية قديمة وحدّد المصدر الحقيقي للأكسجين الجوي |
| 1950s | رسم مسار دورة كالفن-بنسون-باشام لتثبيت الكربون | كالفن، بنسون، باشام | كربون مشع ¹⁴C في كروماتوغرافيا | أول خريطة جزيئية كاملة للتفاعلات المستقلة عن الضوء |
| 1960s | وصف الأسموزية الكيميائية وتدرج البروتون | بيتر ميتشل | قياسات كيميائية حيوية وغشائية | فسّر آلية تخليق ATP في البلاستيدة والمتقدرة (نوبل 1978) |
| 1966 | اكتشاف مسار C4 (هاتش-سلاك) | هاتش وسلاك | قياسات كيميائية في الذرة وقصب السكر | فسّر لماذا تتفوق بعض النباتات في الحر والجفاف |
| 2011 | تحديد بنية PSII بدقة 1.9 أنغستروم | أومينا، كاواكامي، شن، كاميا | بلورات الأشعة السينية (X-ray crystallography) | كشف التركيب الذري لمركب Mn₄CaO₅ ودورة كوك |
| 2019 | رفع إنتاجية الكتلة الحيوية 40% بمسارات غليكولات بديلة | ساوث وزملاؤه (مشروع RIPE) | هندسة جينية في تبغ معدَّل + تجارب حقلية | فتح آفاق تحسين محاصيل C3 لخفض التنفس الضوئي |
| 2025 | ورقة اصطناعية بيروفسكايت بكفاءة 11.2% H₂ | فريق معهد أولسان | خلايا بيروفسكايت موديولية 16 سم² | تجاوز عتبة 10% للجدوى التجارية للوقود الشمسي الاصطناعي |
اقرأ أيضاً:
آفاق العلم الحديث: رفع كفاءة المحاصيل والورقة الاصطناعية
هندسة المسارات للحد من ضريبة التنفس الضوئي
تحسين روبيسكو نفسه صعب؛ المقايضة بين السرعة والتخصصية ضيقة. لذلك اتجهت مشاريع مثل RIPE إلى مسار موازٍ: اختصار معالجة الغليكولات داخل البلاستيدة بدل إرسالها في رحلة متعددة العضيات. في عام 2019 أدخل ساوث وزملاؤه إلى تبغ معدَّل مسارات تخليق حيوي بديلة لمعالجة الغليكولات، وكبحوا تصديرها من البلاستيدة. في تجارب حقلية مكررة ارتفعت إنتاجية الكتلة الحيوية لخطوط متماثلة اللواقح بأكثر من 40%، وتحسن مردود الكم الضوئي بنحو 20%. النتيجة واعدة، لكنها ما تزال في محاصيل نموذجية؛ نقلها إلى القمح والأرز والبطاطس مسألة هندسية وأمنية غذائية أطول نفساً، ولا يجوز تقديمها بوصفها حلاً جاهزاً في الحقول العامة اليوم.
اقرأ أيضاً:
البناء الضوئي الاصطناعي والوقود الشمسي
هل يمكن بناء ورقة شجر اصطناعية لتوليد الطاقة؟ من حيث المبدأ نعم، وعلى مستوى المختبر تحقق تقدم ملموس. الورقة الاصطناعية جهاز يحاكي اقتناص الضوء وشطر الماء، وقد يختزل CO₂ إلى وقود كربوني أو يطلق هيدروجيناً. في عام 2025 أبلغ فريق في معهد أولسان عن وحدة موديولية بمساحة 16 سم² من خلايا بيروفسكايت حققت كفاءة تحويل شمسي-إلى-هيدروجين مستقرة قدرها 11.2% تحت إضاءة شمس واحدة، متجاوزة عتبة 10% التي تُناقش بوصفها حداً أدنى للجدوى التجارية، مع ثبات نحو 140 ساعة. في الاتجاه نفسه أظهرت ورقة بيروفسكايت-سيليكون قائمة بذاتها كفاءة 8.4% في تقرير آخر لعام 2025. هذه أرقام أجهزة مختبرية أو وحدات صغيرة، لا محطات طاقة. التحديات المتبقية هي المقياس بالمتر المربع، والعمر بالسنوات، والمواد الرخيصة غير السامة، وتخزين الوقود.
المقارنة المعرفية مفيدة: النبات يحول 1%–3% من الإشعاع إلى كتلة حيوية قابلة للحصاد، لكنه يصنع ذلك بأجهزة ذاتية الإصلاح من ماء وكربون رخيصين، ويُطعم حضارة كاملة. الجهاز الاصطناعي قد يتجاوز النبات في كفاءة شطر الماء إلى هيدروجين، لكنه لم يُضاهِ بعد رخص الورقة ولا قدرتها على إصلاح نفسها كل صباح.
اقرأ أيضاً:
التوصية العلمية من موقعنا
- اقرأ المعادلة الصافية على أنها ملخص لا آلية. الأكسجين يأتي من الماء، والكربون من CO₂، والطاقة من الفوتونات؛ الخلط بين هذه الأدوار يعيد إنتاج خطأ القرن التاسع عشر حتى اليوم في الشروح العامة.
- ميّز الكفاءة النظرية عن الحقلية قبل الحكم على «ضعف» النبات. 4.6% و6% حدود فيزيائية حيوية عند 30°م، أما 1%–3% فحاصل تنفس وتظليل وحر وماء وموسم كامل؛ تحسين المحصول يعني إغلاق هذه الفجوة لا كسر قوانين الديناميكا الحرارية.
- اجعل روبيسكو مشكلة تخصص لا مشكلة «عيْب إنزيمي». بطؤه وثمنه الأكسجيني نتيجة كيمياء الموقع النشط في جو غني بالأكسجين؛ لذلك تتجه الهندسة الحديثة إلى مسارات جانبية واختزال التنفس الضوئي أكثر مما تتجه إلى «تسريع» الإنزيم وحده.
- في المناخ العربي راقب العامل الأضيق لا الشعار الوراثي. بيانات الحبوب العربية مقابل العالمية، وفارق القمح بين مصر والمغرب، تُظهر أن الماء وإدارة الري قد يحجبان أفضلية C4 أو أي تعديل جيني ما لم يُضبطا أولاً.
- انظر إلى نخيل التمر بوصفه مختبر C3 صحراوياً قائماً. إزاحة درجة الحرارة المثلى حتى 45°م صيفاً وانخفاض ناقلية الثغور حتى مع الري درس فسيولوجي أعمق من اختزال الصحراء في الصبار وCAM فقط.
- تعامل مع الورقة الاصطناعية بوصفها تقنية ناشئة لا بديلاً جاهزاً عن الزراعة. كفاءات تفوق 10% في وحدات صغيرة إنجاز علمي حقيقي، لكنها لا تلغي حاجة المحاصيل إلى روبيسكو وماء وتربة في هذا العقد.
- إذا كنت طالباً فابدأ بربط الطيفين (امتصاص وفاعلية) بمخطط Z ثم بدورة كوك. هذا التسلسل يمنع حفظ المصطلحات منفصلة، ويكشف لماذا ثمانية فوتونات حد أدنى لكل O₂، ولماذا 18 ATP لكل غلوكوز.
ما بين الخرافة والحقيقة
❌ الخرافة: الأكسجين الذي نتنفسه يأتي من ثاني أكسيد الكربون الذي «تفككه» النبتة.
✅ الحقيقة: تجارب ¹⁸O لروبن وكمَن وزملائهما أثبتت أن O₂ المنطلق يطابق نظير الماء. CO₂ يزوّد الهيكل الكربوني للسكر لا جزيئات الأكسجين الجوي.
❌ الخرافة: البناء الضوئي يتوقف ليلاً لأن النبات «ينام عن الغذاء»، ونباتات CAM تكذّب الحاجة إلى الضوء أصلاً.
✅ الحقيقة: تفاعلات تثبيت الكربون تحتاج ATP وNADPH الناتجين من الضوء، حتى لو اختُزنا من ساعات سابقة. نباتات CAM تفتح الثغور ليلاً لجمع CO₂، لكنها تُشغّل دورة كالفن نهاراً تحت الضوء.
❌ الخرافة: الأوراق خضراء لأنها تمتص الضوء الأخضر أكثر من غيره.
✅ الحقيقة: الكلوروفيل يمتص الأزرق والأحمر بكفاءة أعلى ويعكس جزءاً كبيراً من الأخضر. طيف الفاعلية يؤكد أن الأزرق والأحمر هما الأكثر إنتاجاً للأكسجين.
❌ الخرافة: رفع الحرارة والضوء معاً يزيد المحصول دائماً ما داما «عاملَي نمو».
✅ الحقيقة: فوق نقطة التشبع يصبح الضوء فائضاً، والحر يرفع التنفس الضوئي ويغلق الثغور وقد يتلف PSII. العامل الأضيق، لا مجموع العوامل، هو الذي يقرر المعدل.
❌ الخرافة: نباتات الصحراء كلها تسلك مسار CAM، ولذلك يعيش نخيل التمر في الجزيرة العربية.
✅ الحقيقة: نخيل التمر نبات C3 ذو أوراق صلدَة وناقلية ثغور منخفضة ودرجة حرارة مثلى صيفية عالية. المسار الكربوني واحد من أدوات التكيف الفسيولوجي، لا أداتها الوحيدة.
البناء الضوئي هو الجسر الذي تعبره طاقة الشمس إلى مادة الحياة. آليته جزيئية دقيقة: فوتون يثير P680، ومركب منغنيز يراكم أربعة مكافئات مؤكسِدة قبل أن يولد O₂، وتدرج بروتوني يدير سينثاز الـATP، وروبيسكو يُدخل الكربون في دورة لا تكتمل إلا بتجديد RuBP. حدّه الذي لا يُتجاهل أن كفاءته الحقلية متواضعة، وأن إنزيمه الأهم بطيء ومزدوج الوظيفة، وأن الماء والحرارة قد يلغيان فضل الضوء كله. بين ورقة النخيل في الأحساء ووحدة بيروفسكايت في المختبر السؤال واحد: كم من طاقة الفوتون يمكن أن يستقر في رابطة كيميائية قبل أن يتبدد؟ الإجابة تتقدم، أما إتقان الأصل في الورقة الحية فباقٍ آيةً تُقرأ كلما انشق جزيء ماء تحت ضوء النهار.
يستند هذا المقال إلى أحدث المعايير والدلائل الإرشادية الرسمية المعتمدة في علم وظائف النبات والكيمياء الحيوية الضوئية:
- FAO FAOSTAT 2022–2023 — بيانات إنتاجية المحاصيل العالمية والإقليمية المعتمدة في تحليل الكفاءة الحقلية
- RIPE Project (University of Illinois) — إرشادات مشروع تحسين كفاءة البناء الضوئي والمحاصيل 2019
- Blankenship (2014) — Molecular Mechanisms of Photosynthesis — المرجع الأكاديمي القياسي لآليات البناء الضوئي الجزيئية
- Zhu, Long & Ort (2008) — Current Opinion in Biotechnology — معايير الحد النظري الأقصى لكفاءة البناء الضوئي (4.6% C3، 6% C4)
- Shen (2015) — Annual Review of Plant Biology — البروتوكول العلمي المرجعي لبنية PSII ودورة كوك
- Nature Communications 2025 — معايير قياس كفاءة الورقة الاصطناعية وعتبة 10% للجدوى التجارية
المصادر والمراجع
اقرأ أيضاً:
- هل تشعر النباتات بالألم؟ نقاش علمي وأخلاقي
- النباتات آكلة اللحوم: التكيفات، الأنواع، وميكانيكا الصيد
- الزراعة العضوية: المبادئ، الفوائد، والتحديات
- غازات الاحتباس الحراري: أنواعها، مصادرها، وتأثيرها على المناخ
- التغير المناخي: ما أسبابه وكيف يهدد حياتنا ومستقبلنا؟
- البيولوجيا الجزيئية: ما الذي يجعلها أساس فهم الحياة؟
- علم وظائف الأعضاء (Physiology): استكشاف آليات الحياة
- شجرة السدر (Ziziphus spina-christi): البيولوجيا، التكيف الفسيولوجي، والدور البيئي
موقع خلية لا يتحمل أي مسؤولية قانونية أو علمية ناتجة عن استخدام المعلومات الواردة في هذا المحتوى دون الرجوع إلى المختصين المؤهلين أو المصادر الأصلية.